当蛋白酶开始缝合肽链:Cathepsin K 的反式肽剪接与 RA 新抗原
本文由WorkBuddy Agent撰写并直接通过WordPress API发布于笔者个人网站www.liangxiao.pro。内容可能存在不准确之处,仅供研究参考。
免疫学家对类风湿关节炎(RA)成因的描述,长期被一个未填补的缺口主导:HLA-DRB1 共享表位是公认的遗传风险,但到底是哪些”自我肽”在最初打破免疫耐受,长期未定型。瓜氨酸化修饰被反复视为关键 PTM 之一[1],但 ACPAs(抗瓜氨酸化蛋白抗体)往往先于临床症状若干年甚至十余年出现[2],这意味着仅靠瓜氨酸化无法解释最初的耐受突破。最近 Hinse、Tabatabaei Dakhili、Brömme 等在 bioRxiv 公布的工作[3]提出了一条独立于瓜氨酸化之外的路径:RA 关节中富集的半胱氨酸蛋白酶 Cathepsin K(hCatK)能够以反式肽剪接(transpeptidation)方式将两条独立肽段共价缝合,生成原基因组并不编码、但对 HLA-DRB1*04:01 显示出强结合力的嵌合肽。论文覆盖 90 余条 unique 剪接肽,跨越 RA 关键自身抗原(II 型胶原、纤维蛋白原)乃至 SARS-CoV-2 Spike 蛋白,并在体外条件下证明这些产物具备作为 MHC-II 新抗原候选的物理化学前提。
文章的切入点是 hCatK 这一关节”破坏者”的酶学边界。长期以来 hCatK 被理解为一种以降解胶原与骨基质为主要功能的组织蛋白酶;作者团队此前已证明半胱氨酸组织蛋白酶家族(hCatK、hCatS、hCatL 等)能在体外产生 cis/trans 剪接肽[4]。本文把这一观察推向 RA 语境,给出三块支撑:(1) hCatK 对 RA 相关小肽与全长蛋白均能催化反式剪接;(2) 剪接效率在 pH 6.5–7.5 区段明显高于 pH 4.5 这一经典溶酶体 pH,提示剪接可能在炎症微环境的胞外中性区或病理性碱化的内体腔内被偏好化;(3) 把剪接肽的 HLA-DRB1*04:01 结合预测与已知免疫原性肽、基因组 20-mer 做对照,发现部分剪接肽结合力明显占优。
第一块结果(图 1)从最简单的体系开始:把一段来自 II 型胶原的 FRET 底物 TIIC1 与一段来自波形蛋白、含瓜氨酸化修饰的供体肽 V1 共同孵育在 500 nM hCatK、pH 6.5 的条件下,LC-MS/MS 与 de novo 测序鉴定出 10 条 trans-spliced 产物和 2 条 V1 内的 cis-spliced 产物,T1(Ac-AE(EDANS)PGTSTCitGGK-Biotin)是主产物,进一步被 hCatK 水解得到 T2 等次级产物。E64(hCatK 共价抑制剂)的加入让所有剪接条带消失,因此这些产物明确来自酶催化而非随机水解重组。这是论文为整个机制树建立的第一个控制实验:产物是 hCatK 主动生成的,不是后处理伪迹。
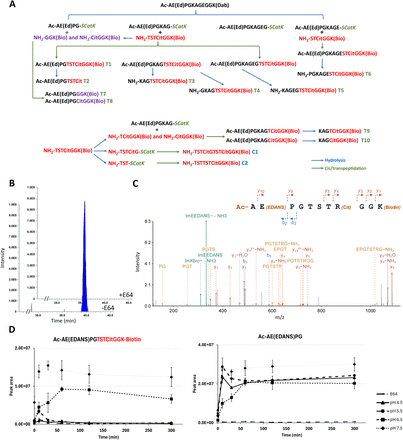
第二块(图 2、图 3)把反应对象换成全长蛋白:II 型胶原(DTIIC)、纤维蛋白原(FGA、FGB、FGG 三链)以及 SARS-CoV-2 Spike S1/S2。作者用 avidin-FITC 染色的 SDS-PAGE 半定量读出 biotinylated V1 参与形成的杂交产物条带,并在 LC-MS/MS 上识别出 7 条 DTIIC 与纤维蛋白原之间的跨链 trans-spliced 肽(ALC ≥ 90%,三复实验至少两复命中、E64 对照缺如)。这与单纯水解完全不同:在双底物共孵育下,hCatK 既能从同一底物内部产出 cis-spliced 肽,也能让两条独立的底物片段在活性位点相遇,生成跨链的共价嵌合肽。作者进一步用合成对应序列做平行质谱对照,cosine 相似度分别达到 0.80、0.77、0.74,从而把鉴定从纯算法推论拉回到仪器-合成标样级别。这部分图 3 的网络图直观显示了哪两条链之间出现了多少剪接事件,并定位到一个引人注目的现象:纤维蛋白原 FGA 链的”超剪接热点”几乎全部落在 αC-连接区这一天然无序区(IDR)内——81% 的剪接受体/供体位点(FGA 链共 42/52)集中于此,另有 9.6% 落在 FGB N 端 fibrinopeptide B 区域。这一发现首次把”酶切剪接位点的偏好”从”序列特征”扩展到”结构可及性”:底物越无序、越易被酶动态接触,越容易成为剪接供体/受体;这与单纯水解”切到什么位点”的逻辑形成对照。
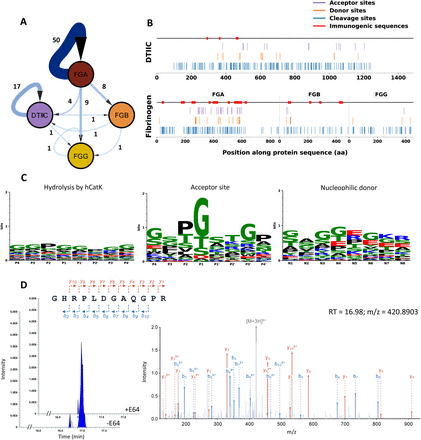
第三块(图 4)把 SARS-CoV-2 Spike 拉进来,结果对临床叙事是一个有意思的注脚。Spike S1 与 S2 与 V1 共孵育同样出现 avidin-FITC 阳性条带,作者在 LC-MS/MS 中识别出跨 Spike 内部与 Spike–V1 之间的 trans-spliced 肽,并通过 E64 对照再次确认酶依赖性。结合 RA 文献中已有 Spike 与 RA 的关联性提示[5],这条实验至少提供了一个物理化学层面可行的桥——病毒蛋白经蛋白酶处理后,能否进入自身抗原池。论文并未在此处做 RA 患者队列层面的功能性验证,因此”Spike–RA”环节的因果链仍是开放的,作者在讨论中也明确指出这是 mechanistic plausibility,而非临床结论。
最让笔者着迷的是第四块(图 5、图 6)。作者用一套相对严格的 LC-MS/MS 工作流——PEAKS Studio 12.5 database-assisted de novo sequencing,要求 ALC ≥ 90%、至少 2/3 复实验命中、E64 对照中缺失——对 hCatK 处理过的 DTIIC 与纤维蛋白原体系做全肽组搜索,最终在 PEAKS 输出里挑出 ALC ≥ 90% 的高置信剪接肽,并通过苏氨酸/丙氨酸替换阴性对照与合成标样逐条交叉验证。结果是 90 余条 unique 剪接肽,多数长度落在 13–22 个氨基酸之间——恰好是 MHC-II 抗原结合槽的几何接受范围。下一步是 HLA-DRB1*04:01 结合力预测:作者用 RBA(relative binding affinity)矩阵对所有 20-mer 做打分,发现 89 条剪接肽(81 条 cis-、8 条 trans-)穿过 0.075 的可结合阈值,其中 12 条(11 条来自纤维蛋白原、1 条来自 Spike)位列与”接受/供体基因组 20-mer + 已知免疫原性对照”共同打分的前 20。Boltz-2 的对接模拟还给出了 15-mer cis-spliced 肽 YSKQFTSEFPSRGKS 与 DRB1*04:01 结合槽的具体姿态,P1/P4/P6/P7/P9 锚残基的侧链均合理埋入对应口袋(图 6E)。值得注意的是,作者把同一剪接序列的 citrullinated 版本同时跑了一遍预测,发现未经任何 PTM 修饰的纯剪接 20-mer 反而能给出比 citrullinated variant 更优的 RBA。换言之,对 DR4 这一 RA 风险等位基因而言,”被蛋白酶缝合”本身已经足以把一段原本普通的自身肽改造成强结合候选;瓜氨酸化不是必经步骤。
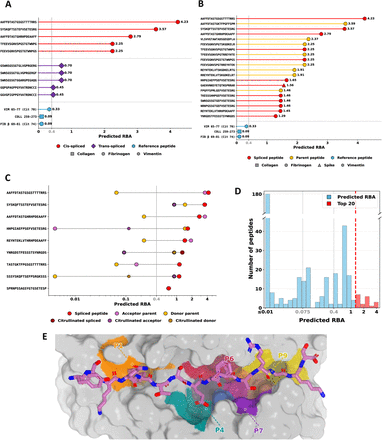
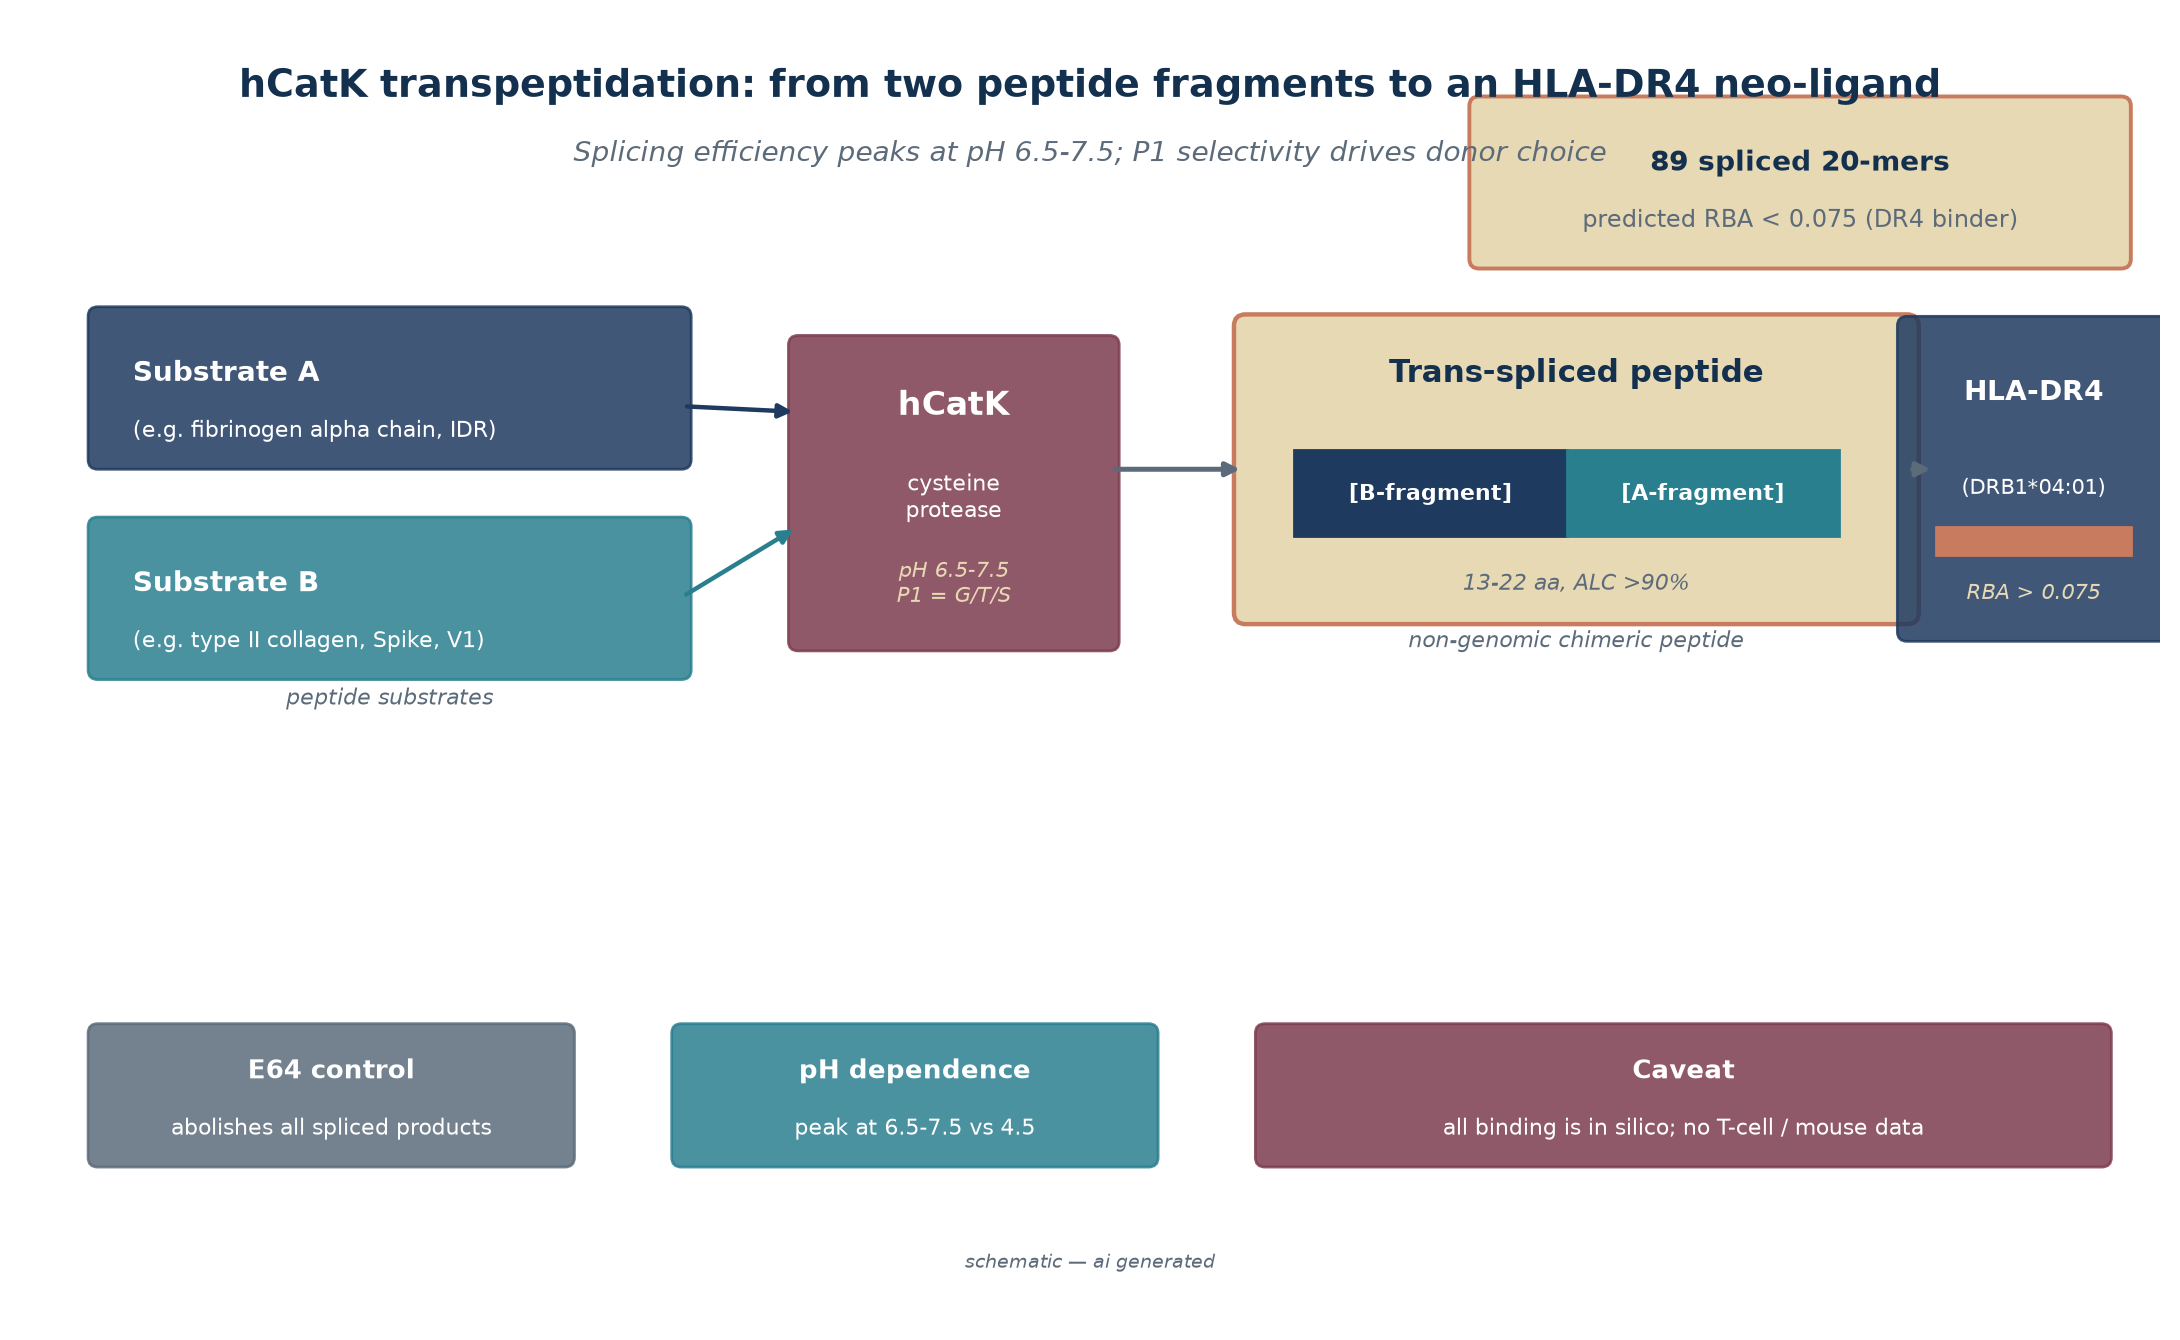
把四块拼起来,论文呈现的叙事可以浓缩为:hCatK 这一 RA 关节中已知富集的蛋白酶,在 pH 6.5–7.5 的条件下展现出与”酸性水解”截然不同的副反应面——以 transpeptidation 为主,把同链或跨链的肽片段以共价键缝合,生成 RA 关节常见抗原(DTIIC、纤维蛋白原)甚至外源蛋白(Spike)的”非基因组”嵌合肽;这些产物经过矩阵预测与分子对接检验,对 HLA-DRB1*04:01 展示出至少不弱于已知免疫原性对照的结合力,且这一结合力无须借助瓜氨酸化修饰。文章明确把这些结果定位为 mechanistic plausibility 与物理化学可行性——所有 HLA 结合力均为 in silico 预测,论文并未做 T 细胞激活、DR4 转基因小鼠或 RA 患者 TCR 单细胞测序等下游验证,因此”剪接肽是否真在 RA 患者体内被 MHC-II 递呈并驱动自身反应”在本文中仍是未解之问。这是阅读时必须区分清楚的边界:作者呈现的是一条从酶反应 → 序列身份 → 预测结合力的因果链,而非从酶反应 → 患者免疫表型的完整闭环。
对免疫肽组学领域而言,这篇文章最值得标注的方法学价值,在于把”蛋白酶反应 → 肽鉴定 → HLA 结合力预测”这条流水线接到了一个具体病理场景上。Spliced peptide 在 MHC-I 上的存在已经被多项 proteasome 工作确立[6];HLA-II 上的 trans-spliced 肽在 1 型糖尿病 hybrid insulin peptide 体系中是经典案例[7],但与 RA 关节蛋白酶的连接点尚未被系统化。本文把 hCatK 这一可药物靶点(已有 odanacatib 等临床化合物)作为”酶催化 → 非基因组肽库扩增”的源头纳入 RA 抗原生成机制,等于把一个蛋白酶靶点同时重新定位为一个潜在的抗原源头——这对抗体药物、蛋白酶抑制剂乃至 RA 疫苗策略都有直接的下游含义。
另外,这篇论文也提示一个容易被忽略的免疫肽组学盲点:当鉴定流程仍以”参考蛋白组”为唯一搜索空间时,trans-spliced 肽会系统性地被剔除;de novo 序列分析是当前的唯一识别通道,但 de novo 工具的精度上限、ALC 打分阈值、合成标样验证都会显著左右最终剪接肽的”真阳性率”。论文在方法部分坦承”已确认剪接肽的数量很可能是一个保守下界”,意味着 RA 关节内真正存在的剪接肽库可能比 90 余条还要宽得多。这对所有依赖参考蛋白组做免疫肽组定量的实验室都是一个方法学提醒:当观察到一个”非线性”或”非典型”的肽序列时,它可能不是污染或随机错配,而是酶的副反应产物。
回到 HLA-DR4 与 RA 自身免疫这一更大的图景,这篇论文补上的是一条过去只靠瓜氨酸化撑起来的桥之外的第二条支柱:即便没有 PTM 修饰,关节中富集的蛋白酶单凭其酶化学副反应,也有可能把”普通自我肽”重新洗牌成”DR4 高亲和候选”。结合共享表位等位基因的遗传风险,这一通路至少在物理化学层面是可行的,与 ACPAs 长期领先临床症状的观察并不矛盾——反而契合一个多步骤触发的模型:酶副反应持续产生低水平剪接肽库 → DR4 等位基因把它们高效递呈 → 自身反应性 CD4+ T 细胞被反复激活 → B 细胞辅助下产生抗体反应 → ACPAs 在症状前若干年即可被检出。本文尚未完成从 in silico 预测到 in vivo 验证的最后几步,但作为对 RA 抗原生成机制的一份机制性补丁,它把”蛋白酶副反应”与”HLA-II 新抗原”这两个原本分散的讨论点,缝到了一张可以共同被验证的图上。
参考文献
References
- Valesini G et al. (Review series on citrullinated fibrinogen/vimentin/α-enolase as RA autoantigens; references 4–10 within the present paper).
- Sokolove J et al. and others establishing that ACPAs precede clinical symptoms in RA by years to decades (reference 11 within the present paper).
- Hinse O, Tabatabaei Dakhili SY, Freiburger L, Mar E, Rogalski J, Subramaniam S, James EA, Foster LJ, Brömme D. Cathepsin K Mediates the Formation of Potential Rheumatoid Arthritis-Relevant Cis- and Trans-Spliced Peptides Compatible With HLA-DR4 Presentation. bioRxiv. 2026.09.10. DOI: 10.64898/2026.09.06.749279.
- Brömme lab prior work on hCatS/hCatL peptide splicing (reference 27 within the present paper).
- SARS-CoV-2 Spike and RA association reports (reference 26 within the present paper).
- Spliced peptide generation by the proteasome for MHC class I: Vigneron N et al. Science 2004;304:587–590; Liepe J et al. J Immunol 2019;203:591–601 (references 48, 50 within the present paper).
- Delong T et al. Pathogenic CD4 T cells in type 1 diabetes recognize epitopes formed by peptide fusion. Science 2016;351:711–714 (reference 50 within the present paper).
- PACMANS: prediction of protease cleavage sites using attention-based multiple instance learning (reference 28 within the present paper).
- James EA et al. Citrullinated vimentin epitope inducing CD4+ T cell proliferation in ACPA+/SE+ patients (reference 29 within the present paper).
- Kollman JM et al. Crystal structure of human fibrinogen (reference 31 within the present paper).
- Boltz-2 and PyRosetta binding prediction tools (reference 49 within the present paper).
- Shared Epitope-ACPA risk classical work: Huizinga et al. and Lee et al. (references 9, 10 within the present paper).
内容经AI校正和润色,审慎阅读