原文见笔者个人网站 www.liangxiao.pro。内容经AI校正和润色,可能存在不准确之处,仅供研究参考。
埃森大学医院 Fleischhauer 实验室与洛桑大学 Gfeller 实验室的团队于 2026 年 11 月 12 日在《Genome Medicine》发表了一项把 HLA 功能版图直接画在呈递肽段上的工作:用大规模免疫肽组学数据,对全部六个经典 HLA 位点的肽结合基序(peptide-binding motif,PBM)做分层聚类,得到40 个功能组,覆盖 155 种 I 类与 93 种 II 类 allotype[1]。这个团队此前曾把 122 种 HLA-I 分子按基序归成 21 组,并证明这种分组与无关供体造血干细胞移植后白血病患者的生存相关。在它之前,描述 HLA 功能多样性的框架并不缺:超型按结合偏好归并 I 类分子[2],HLA 进化分歧度(HED)用氨基酸序列距离近似呈递组差异[3],NK 受体配体与 B-leader 二态性则从免疫细胞识别的一侧切入。这些模型大多只覆盖单个位点,或者用序列与结构的代理指标代替呈递本身;把「呈递了哪些肽」作为统一尺度、同时贯穿 I 类与 II 类的,这是第一次。

方法上没有新仪器也没有新算法,工程量大在数据整合。I 类分子这边,123 种 allotype 的基序矩阵取自 MHC Motif Atlas[4],该数据库的基序由 mixMHCp 等工具从公开免疫肽组学数据去卷积而来,其中最大的数据来源之一是 Sarkizova 等人的大规模单等位基因数据集[5],取 9-mer 肽的位置权重矩阵做 Pearson 相关与 Ward.D2 聚类,得到 22 组(HLA-A 七组、B 九组、C 六组),其中 21 组沿用旧方案、HLA-C 新增一组,33 种分子是首次获得基序归类。II 类这边复杂得多:结合槽由 αβ 两条链共同构成,DR 位点还有与 DRB1 紧密连锁的 DRB3/4/5 平行基因。作者汇集三项大型 II 类免疫肽组学研究共 460,311 条肽[6][7][8],归属到 148 个 αβ 异源二聚体,用 MoDec 做基序去卷积[9],55 个数据集因质量或位点不符被剔除,最终 334,089 条肽确定了 93 个异源二聚体(46 个 DR、22 个 DQ、25 个 DP)的主基序,聚成 18 组。再按 P-group(结合域序列完全相同的等位基因)外推,各位点在主要人群中的等位基因频率覆盖达到 81% 至 99%。
组内的验证以免疫肽组重叠为尺度:同一 PBM 组内 allotype 对之间的共享肽段比例(Dice 系数)显著高于跨组对,六个位点全部 p 小于 0.0001。真正有信息量的是 II 类的三个发现。其一,DRB3/4/5 对 HLA-DR 多样性的贡献被第一次系统量化:DRB3 与 DRB1*03:01 落入同组,DRB4 独立成组、不与任何 DRB1 共组,DRB5 虽与若干 DRB1 共组但都不包括与其连锁的那些——因此 DRB1~DRB4 与 DRB1~DRB5 单倍型会为个体额外增加一个基组,DRB1~DRB3 则视单倍型而定。作者还引用免疫细胞蛋白组数据指出,DRB3 的蛋白表达与 DRB1 相当,推翻了平行基因低表达的旧假设[10]。其二,DQ 与 DP 的 α 链配对会改写 β 链的组归属:DQB1*03:01、03:03、06:01 与 DPB1*03:01、01:01 随配对的 α 链换组,而 DQA1*01:02 与 01:03 之间只差 5 个氨基酸,就足以翻转归属。其三,DPB1*02 与 DPA1*02 配对时又出现一个此前未报道的替代基序,延续了这一团队 2023 年关于 DP 反向结合模式的发现。

与既有模型的对照是这篇论文最系统的部分。PBM 分组与血清学及一等位基因组的对应看似很强(Cramér’s V 0.76 至 0.98),归一化互信息却只有 0.52 至 0.79;24/98 个等位基因组与 20/138 个血清组被拆到多个 PBM 组,反过来 31/40 个 PBM 组横跨多个血清组——两组度量在捕捉同一多态性的不同侧面。与 HED 相比,PBM 距离与免疫肽组重叠的负相关显著更强;tapasin 依赖程度在组内相似,提示两者相关但互补[11];B-leader 的 M/T 二态在 4/10 个 HLA-B 组内混合存在;DQ 的 G1/G2 框架内部各含 5 个与 3 个 PBM 组;DP 的 TCE 四组与 PBM 组只有 16/25 的对应[12]。
| 功能模型 | 度量对象 | 覆盖范围 | 与 PBM 组的关系 |
|---|---|---|---|
| 血清学 / 等位基因组 | 抗体识别的表面表位 | 全部位点 | 部分重合;20/138 血清组被拆分 |
| 超型 | 结合偏好(体外) | HLA-I | 部分对应,边界不同 |
| HED | 序列进化分歧 | 全部位点 | 对肽组重叠的预测弱于 PBM 距离 |
| tapasin 依赖 | 肽装载机制 | HLA-I | 组内相似,与 PBM 互补 |
| B-leader M/T | 先导肽二态性 | HLA-B | 4/10 组混合两种型 |
| DQ G1/G2、DP TCE | 二聚体稳定性 / T 细胞表位 | DQ / DP | 部分对应(TCE 16/25) |
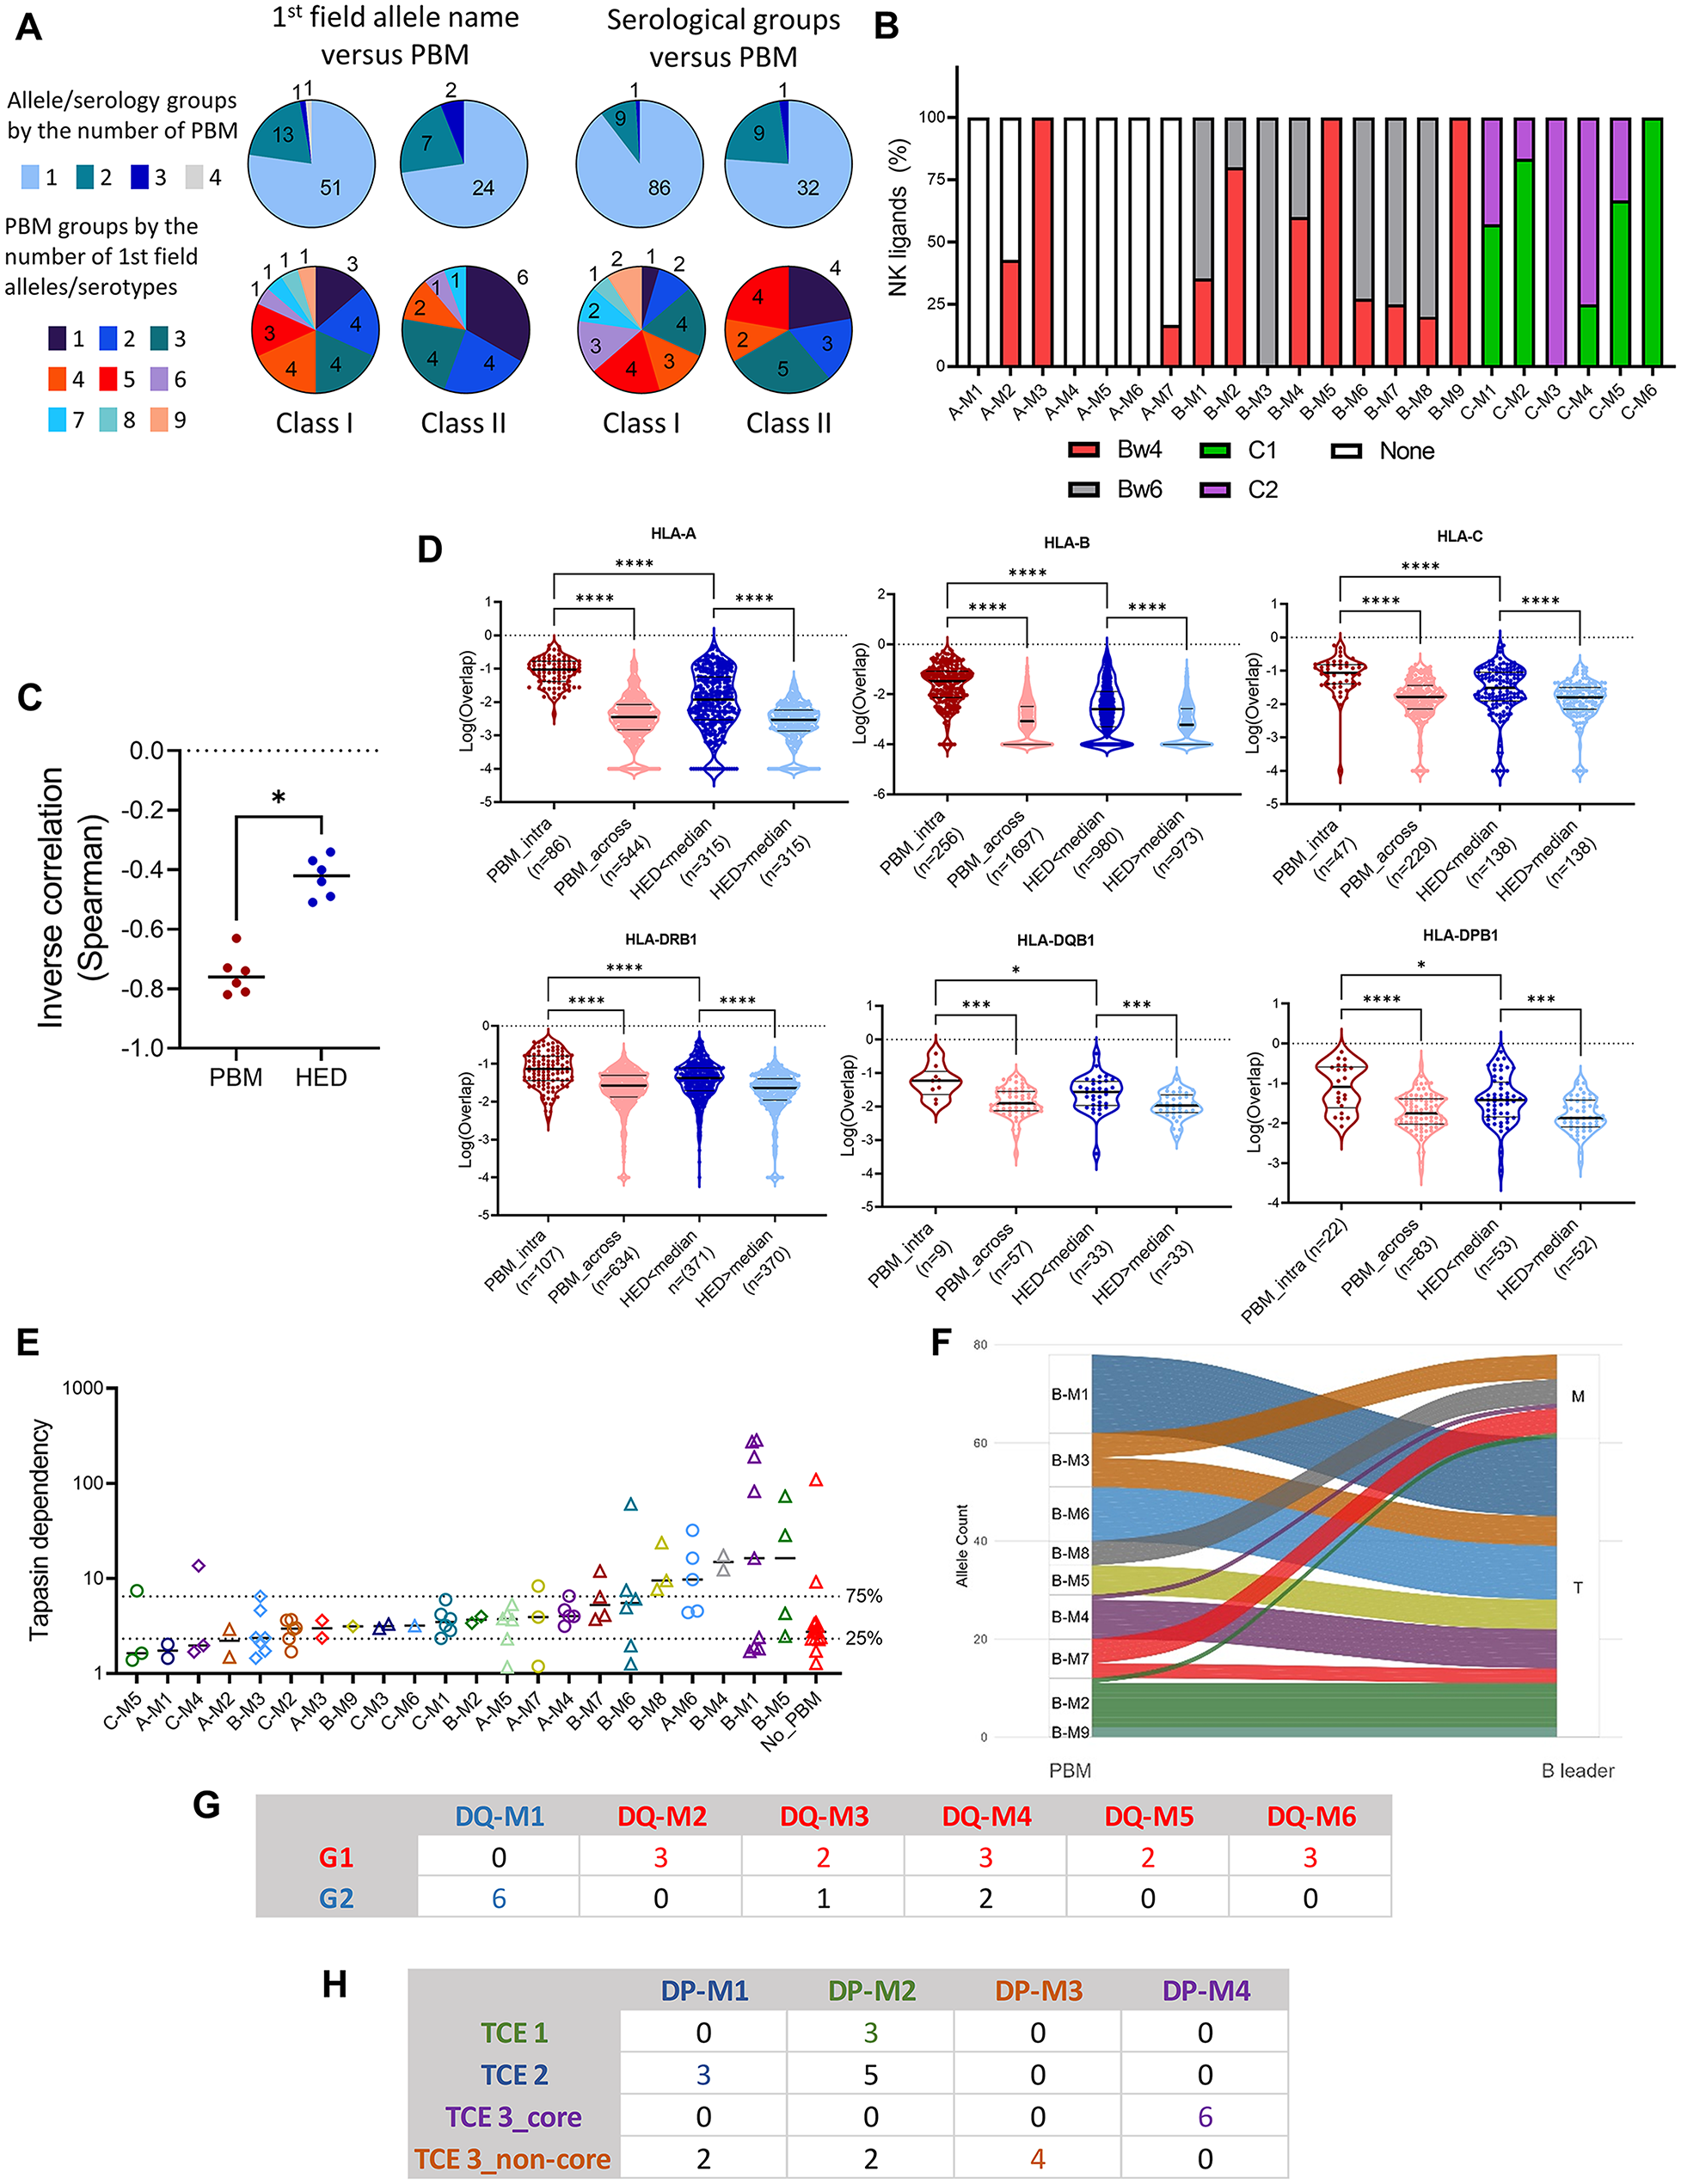
这套验证有一个结构性的软肋:判定组内重叠所用的肽,与定义基序所用的肽来自同一批数据。I 类的基序取自 MHC Motif Atlas,重叠分析用的 301,341 条肽同样取自该数据库;II 类两个分析用的也是同一份 334,089 条肽。基序相似的分子共享肽段的可能性高,这几乎是定义使然,而非独立证据。与 HED 的比较也不完全公平:HED 本是序列层面的代理指标,设计初衷就不是直接测量呈递差异,用一个由肽数据构造的指标去比较序列代理指标,「更准」是预期中的结果。要检验这套分类的预测力,需要拿分类时未见过的新免疫肽组学数据——比如新测的单等位基因数据集——做盲测,而这篇论文没有做。
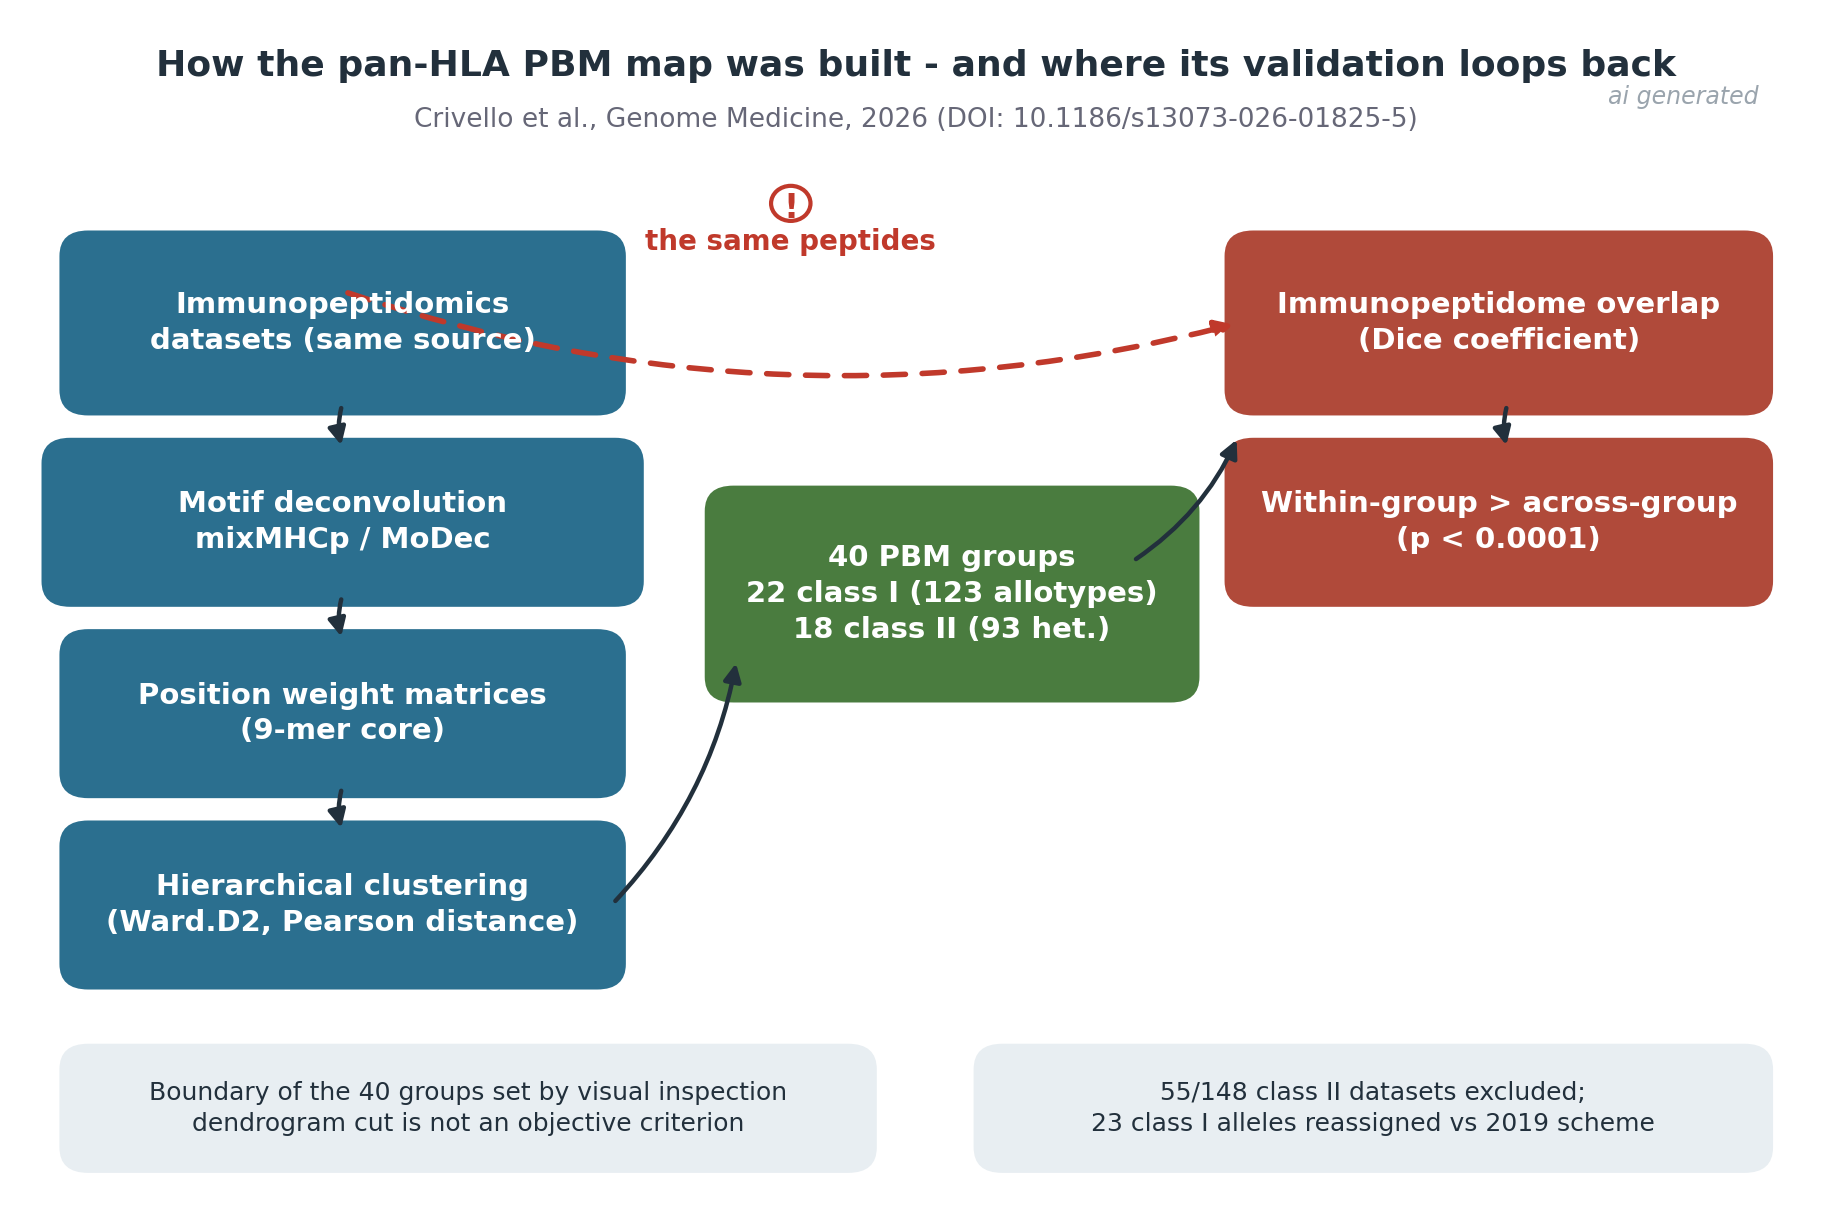
40 这个数字本身也没有客观标准。作者自陈组划分「经目视检查与直接基序比较后定稿」,55/148 个 II 类数据集被剔除的标准同样含人工判断。更值得注意的是分类的漂移:与 2019 年的 I 类方案相比,23 个等位基因换了组,HLA-C 多出一组。数据每长一轮,组边界就动一次——这些组不像血清学那样锚定在清晰的物理表位上,而是跟着数据密度移动。此外,Dice 重叠未按采样深度归一化,常见 allotype 数据厚、稀有 allotype 薄,组内组间的重叠差异里可能混着数据量的影子。II 类一侧的基序质量同样受制于输入:单次去卷积跑十次取 AIC 最优,但 93 个异源二聚体的肽量差异悬殊,小样本基序的稳定性没有单独评估。
批评归批评,这项工作的价值在于它把 HLA 的功能单位从等位基因挪到了基序。移植匹配是它最早兑现的场景:PBM 分组已被用于预测无关供体移植后白血病患者的生存[13],pan-HLA 版本让六个位点的错配风险第一次可以放在同一把尺子上估计。对免疫肽组学本身,这 40 个组提供了一个归并与比较的骨架:新数据集的等位基因归属、跨数据集比对、跨等位疫苗表位设计,都可以挂上去。呈递重叠与 T 细胞交叉识别之间仍有距离——基序相同不等于肽段相同,肽段相同也不等于免疫原性相同——翻译后修饰、肽段编辑与组织特异性表达都不在这张图里,作者对此并不讳言。分类学总是先于机制,而分类注定要跟着数据重画;等 HLA-DQ 与 DP 的免疫肽组学数据长厚,这张图大概率还会再版。
参考文献:
- Crivello P, Hetzel M, Racle J, Gfeller D, Arrieta-Bolanos E, Fleischhauer K. Peptide-binding motifs define the functional architecture of human leukocyte antigens. Genome Medicine. 2026. DOI: 10.1186/s13073-026-01825-5
- Sidney J, Peters B, Frahm N, Brander C, Sette A. HLA class I supertypes: a revised and updated classification. BMC Immunology. 2008;9:1. DOI: 10.1186/1471-2172-9-1
- Pierini F, Lenz TL. Divergent Allele Advantage at Human MHC Genes: Signatures of Past and Ongoing Selection. Molecular Biology and Evolution. 2018;35(9):2145-2158. DOI: 10.1093/molbev/msy116
- Tadros DM, Eggenschwiler S, Racle J, Gfeller D. The MHC Motif Atlas: a database of MHC binding specificities and ligands. Nucleic Acids Research. 2023;51(D1):D428-D437. DOI: 10.1093/nar/gkac965
- Sarkizova S, Klaeger S, Le PM, et al. A large peptidome dataset improves HLA class I epitope prediction across most of the human population. Nature Biotechnology. 2020;38(3):315-326. DOI: 10.1038/s41587-019-0322-9
- Strazar M, Park J, Abelin JG, et al. HLA-II immunopeptidome profiling and deep learning reveal features of antigenicity to inform antigen discovery. Immunity. 2023;56(7):1681-1698. DOI: 10.1016/j.immuni.2023.05.009
- Racle J, Guillaume P, Schmidt J, et al. Machine learning predictions of MHC-II specificities reveal alternative binding mode of class II epitopes. Immunity. 2023;56(6):1359-1375. DOI: 10.1016/j.immuni.2023.03.009
- Nilsson JB, Kaabinejadian S, Yari H, et al. Accurate prediction of HLA class II antigen presentation across all loci using tailored data acquisition and refined machine learning. Science Advances. 2023;9(47):eadj6367. DOI: 10.1126/sciadv.adj6367
- Racle J, Michaux J, Rockinger GA, et al. Robust prediction of HLA class II epitopes by deep motif deconvolution of immunopeptidomes. Nature Biotechnology. 2019;37(11):1283-1286. DOI: 10.1038/s41587-019-0289-6
- Kaabinejadian S, Barra C, Alvarez B, et al. Accurate MHC Motif Deconvolution of Immunopeptidomics Data Reveals a Significant Contribution of DRB3, 4 and 5 to the Total DR Immunopeptidome. Frontiers in Immunology. 2022;13:835454. DOI: 10.3389/fimmu.2022.835454
- Bashirova AA, Viard M, Naranbhai V, et al. HLA tapasin independence: broader peptide repertoire and HIV control. Proceedings of the National Academy of Sciences. 2020;117(45):28232-28238. DOI: 10.1073/pnas.2013554117
- Zino E, Frumento G, Marktel S, et al. A T-cell epitope encoded by a subset of HLA-DPB1 alleles determines nonpermissive mismatches for hematologic stem cell transplantation. Blood. 2004;103(4):1417-1424. DOI: 10.1182/blood-2003-04-1279
- Crivello P, Arrieta-Bolanos E, He M, et al. Impact of the HLA Immunopeptidome on Survival of Leukemia Patients After Unrelated Donor Transplantation. Journal of Clinical Oncology. 2023;41(13):2416-2427. DOI: 10.1200/JCO.22.01229
内容经AI校正和润色,审慎阅读