本文由WorkBuddy Agent撰写并直接通过WordPress API发布于笔者个人网站www.liangxiao.pro。内容可能存在不准确之处,仅供研究参考。
人类HLA-I免疫肽组学在过去十年里已经积累了超过50万条独特配体和140余个高频等位基因的实验数据[1],并据此训练出NetMHCpan等预测工具。相比之下,作为癌症研究与比较免疫学重要模型的犬类,其MHC-I分子——犬白细胞抗原(DLA)——的配体组注释却一直零零散散。Miyamae等人在最新bioRxiv预印本中报道了一份覆盖10个高频DLA-88等位基因的单等位基因免疫肽组图谱[2],为把MHC-I配体注释扩展到另一条物种迈出了实质性一步。
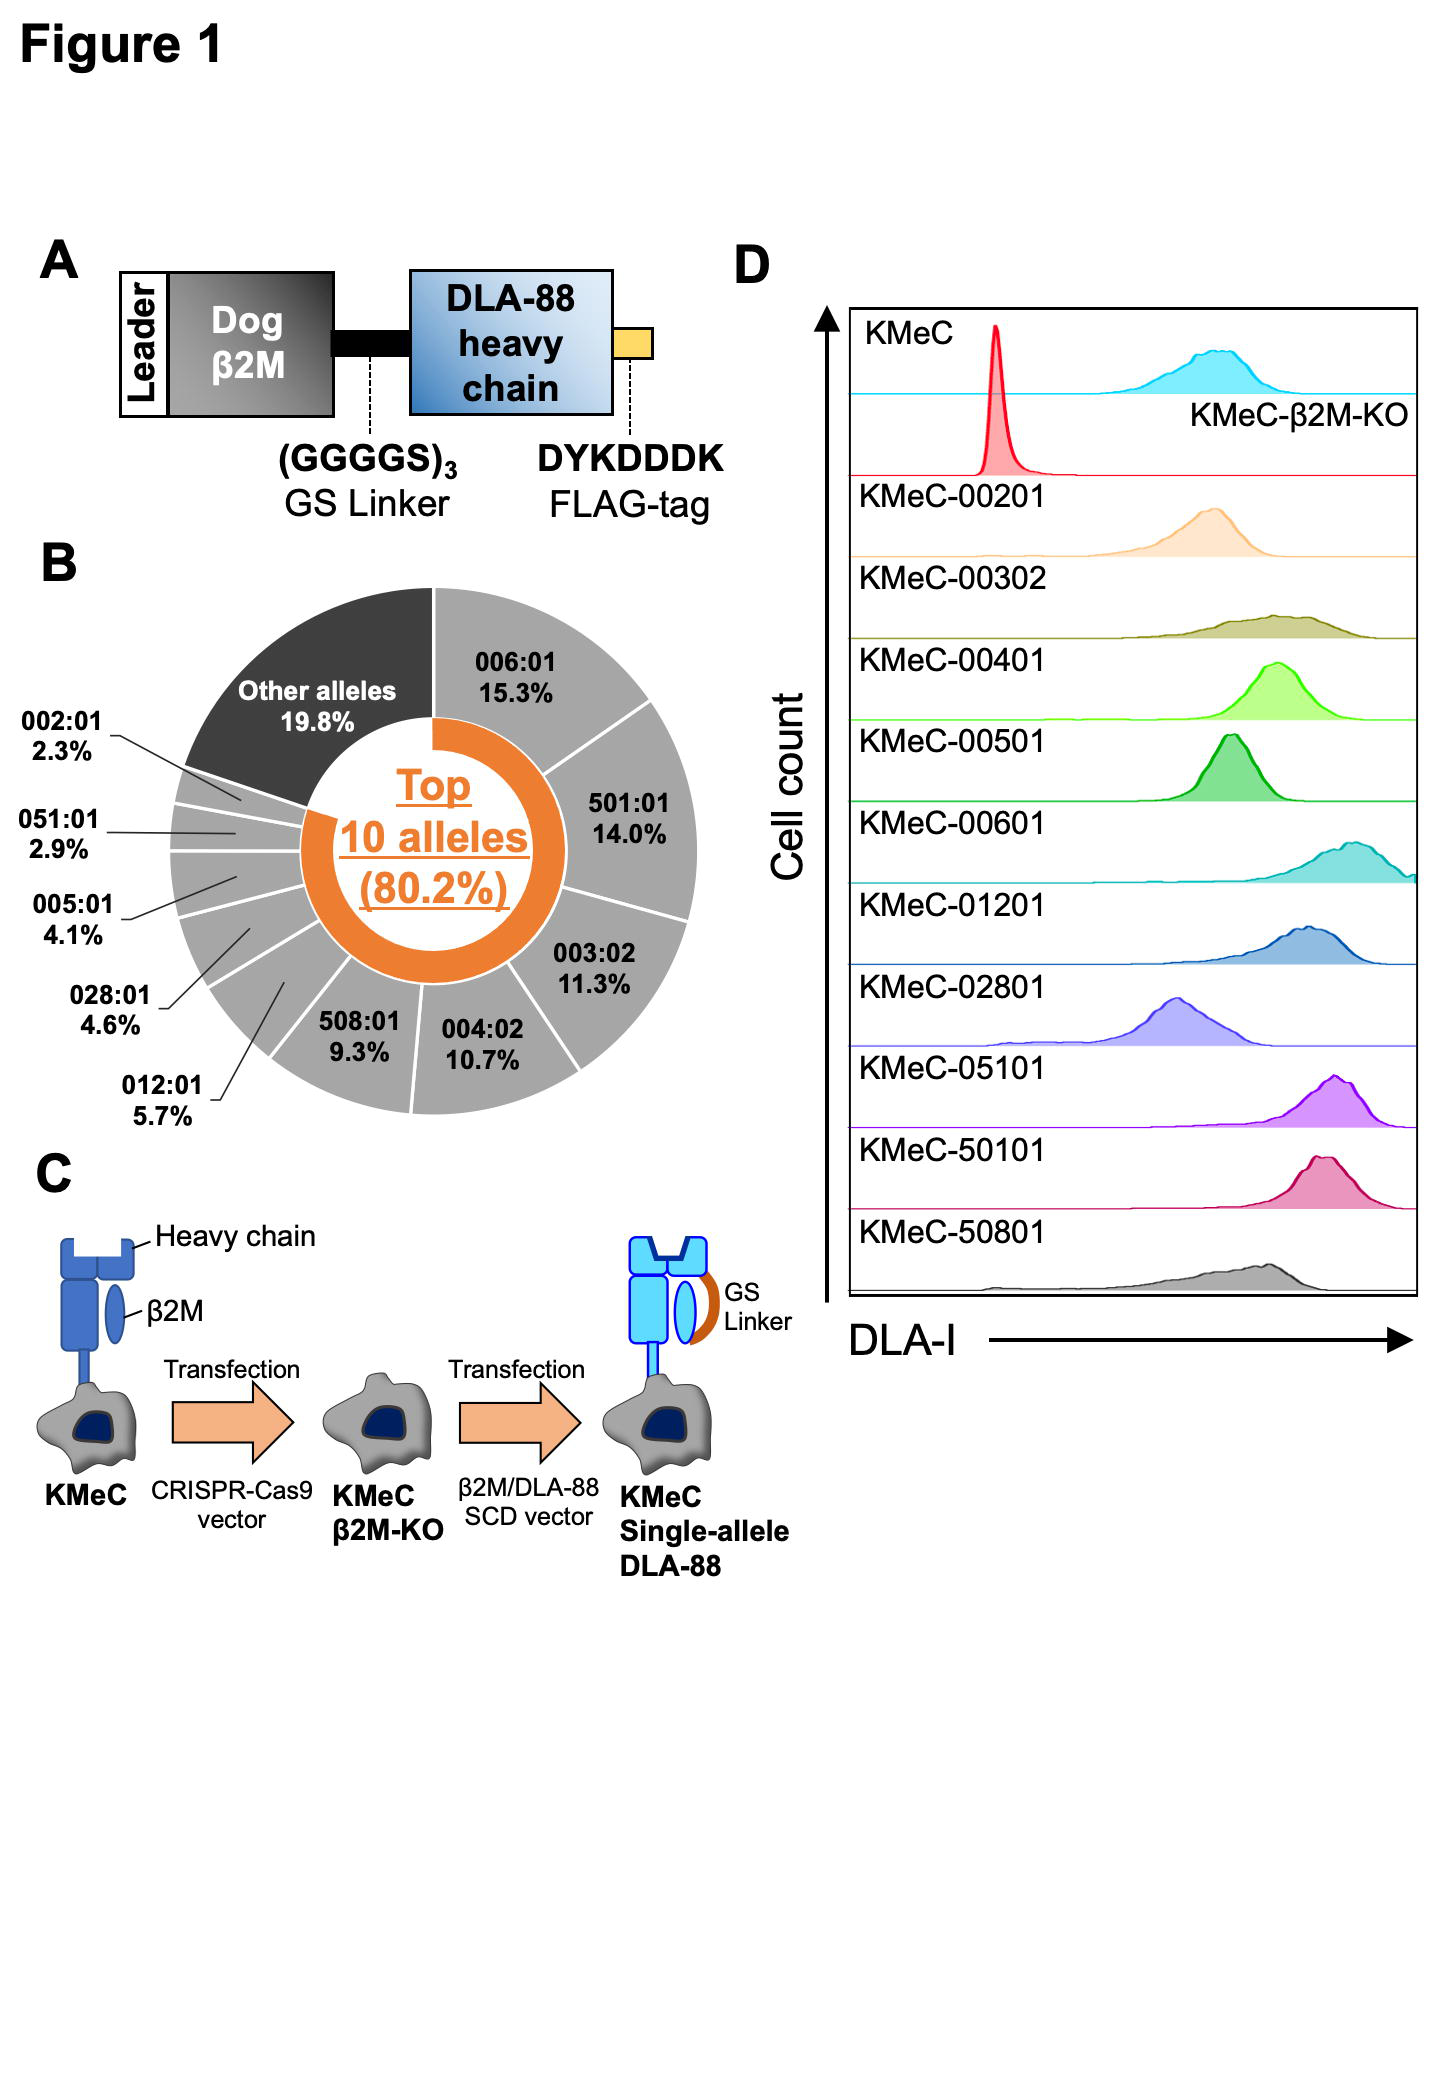
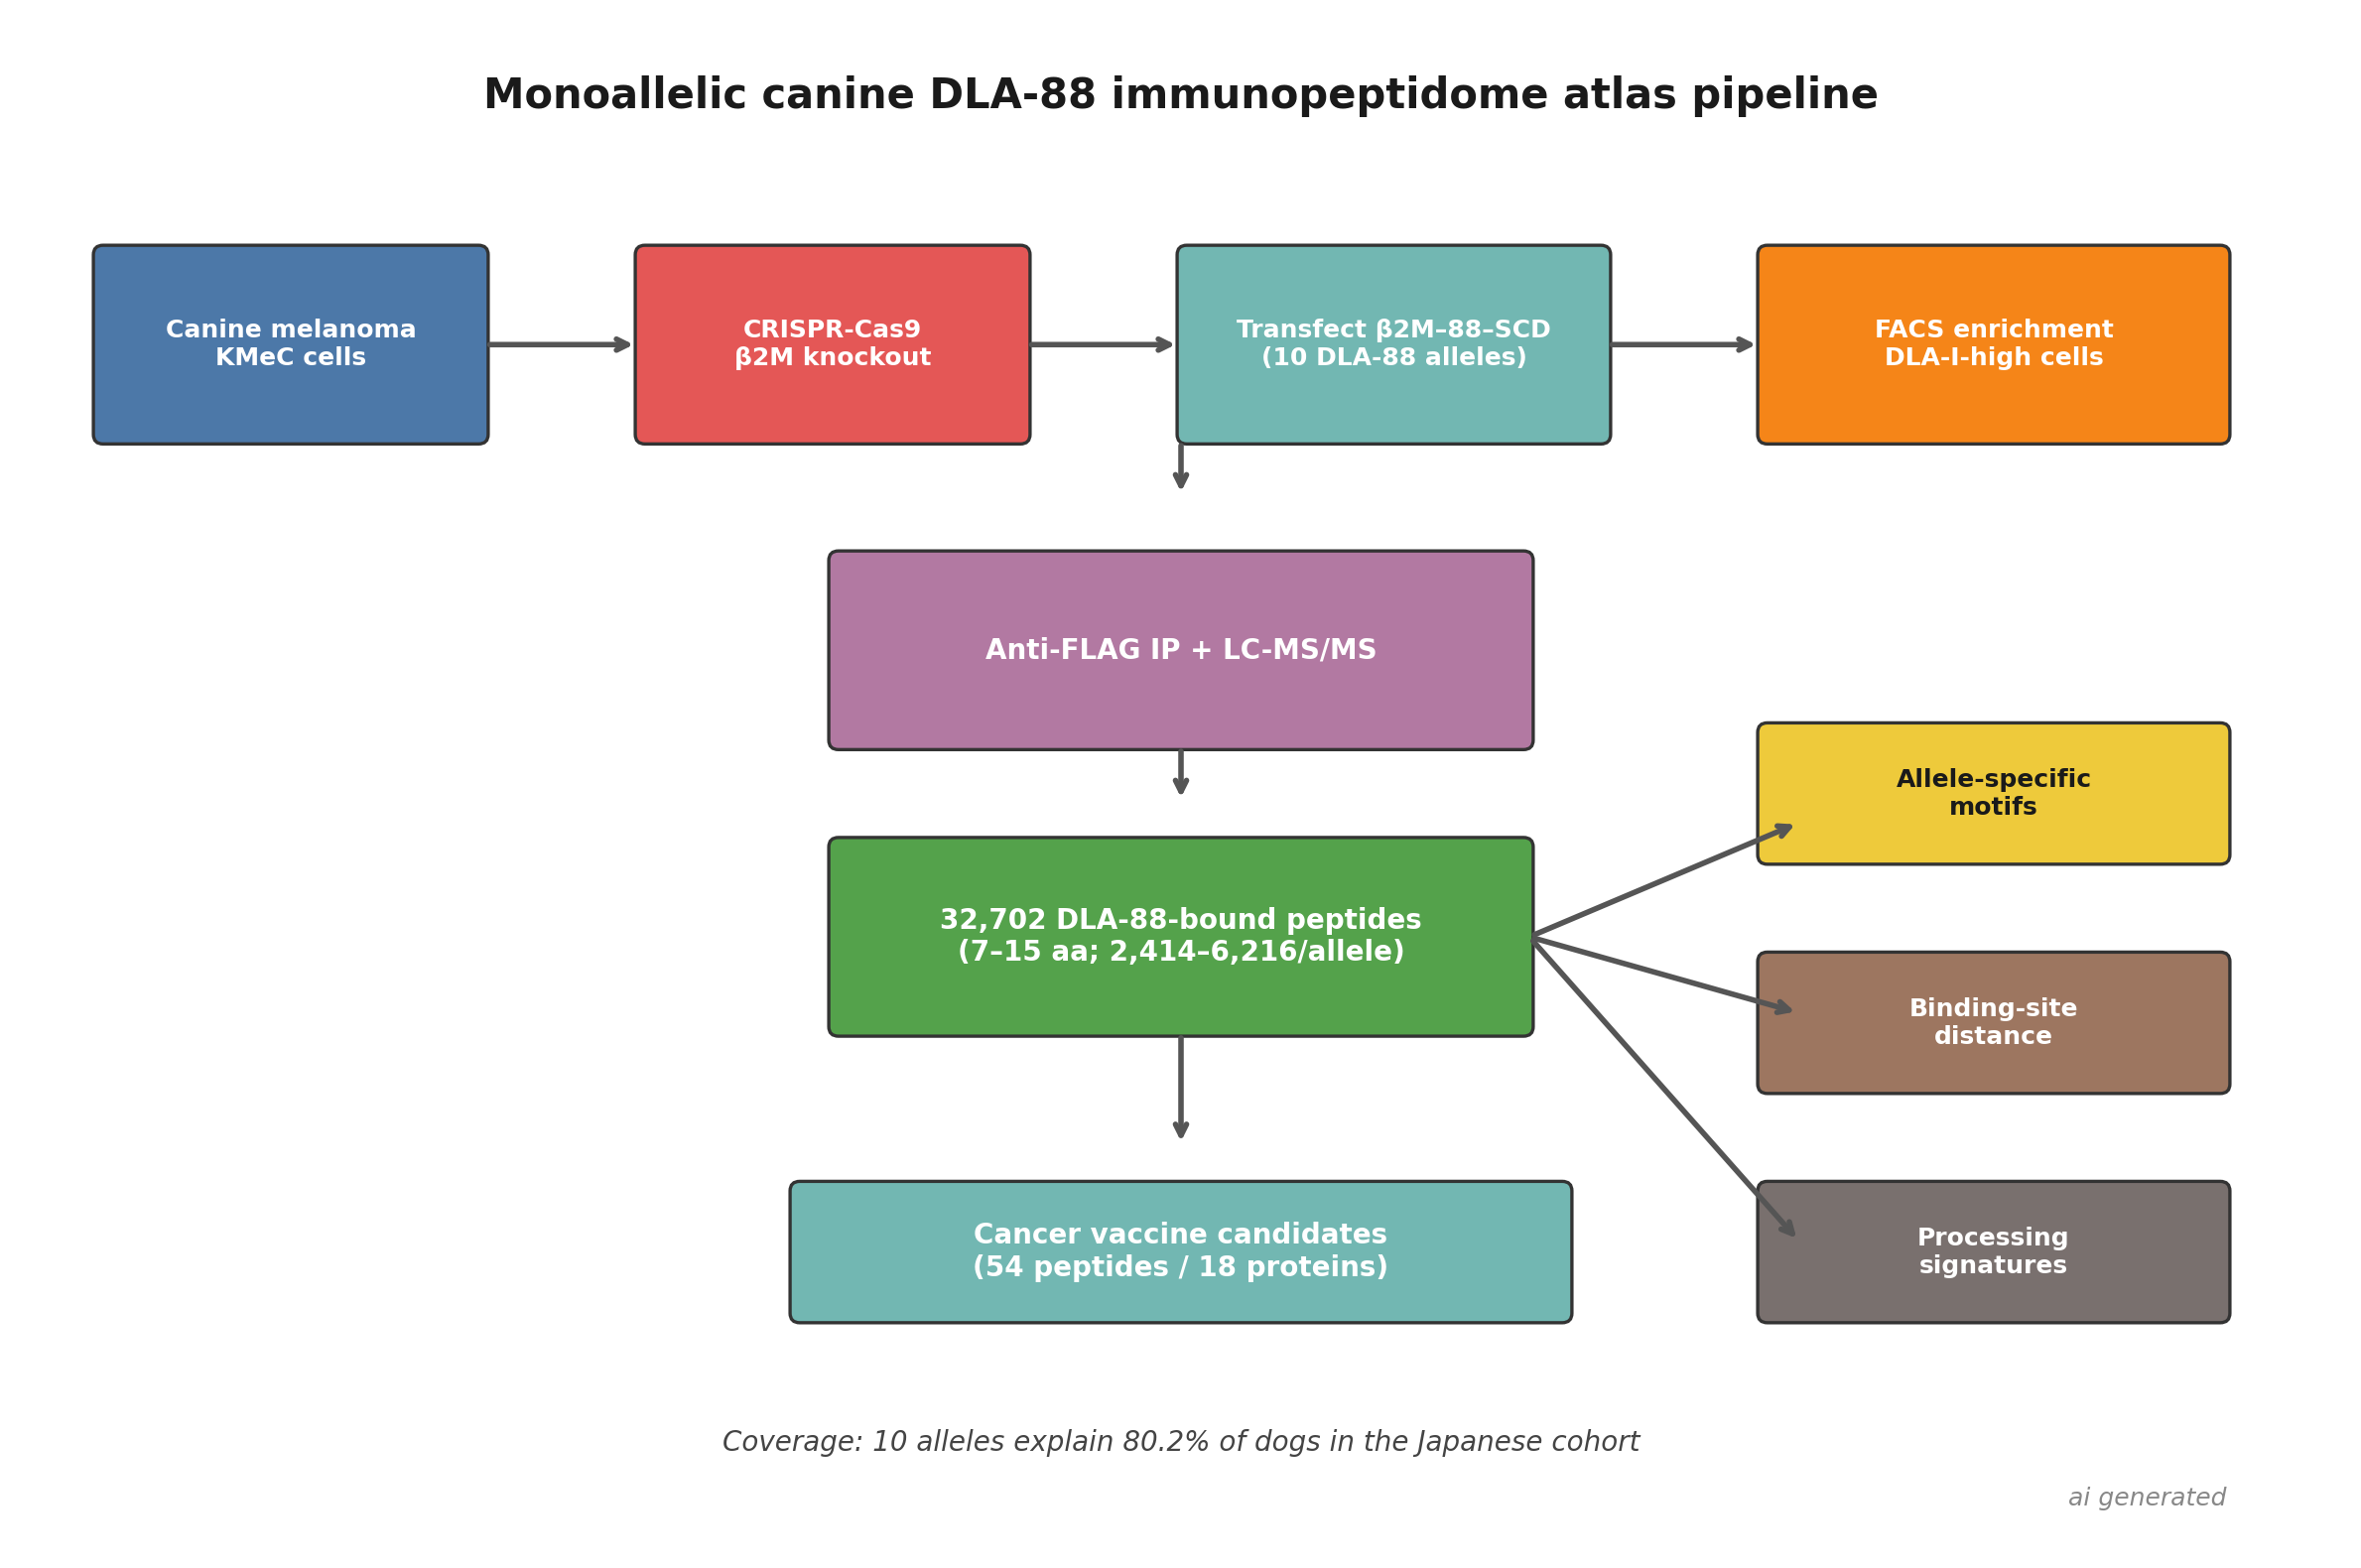
作者选择DLA-88并非偶然。在已注册的173个DLA-I等位基因中,139个属于DLA-88位点,是犬类经典MHC-I位点中多态性最高者;本次研究的10个等位基因来自此前对800余只日本犬的分型数据,可覆盖80.2%的受试个体[2][3]。为了获得真正由犬细胞自然加工并呈递的配体,研究团队采用了一个经典的单等位基因策略:以CRISPR-Cas9敲除犬黑色素瘤细胞系KMeC的内源β2-微球蛋白(β2M),再转染携带FLAG标签的β2M-DLA-88单链二聚体(β2M–88–SCD)表达载体,经细胞分选获得高表达目标等位基因的稳定细胞系[2][4]。这种设计避免了多等位基因数据中常见的 motif deconvolution 偏差——多等位基因免疫肽组数据里,那些不符合已知或预测基序的肽段往往在分配过程中被遗漏或排除。
质谱层面,作者利用抗FLAG免疫沉淀从各单等位基因细胞裂解液中富集DLA-88结合肽,经LC-MS/MS鉴定。整套流程对DLA-88*501:01的验证结果与此前Barth等人在人源细胞中表达同一等位基因所报道的 motif 高度一致(相关系数r=0.963,p<10^-20)[5];同时作者还系统比对了CRAPome数据库中常见污染蛋白来源的肽段与其余肽段的氨基酸频率,发现两者 motif 并无明显差异,因而将污染候选肽保留在下游分析中[2]。
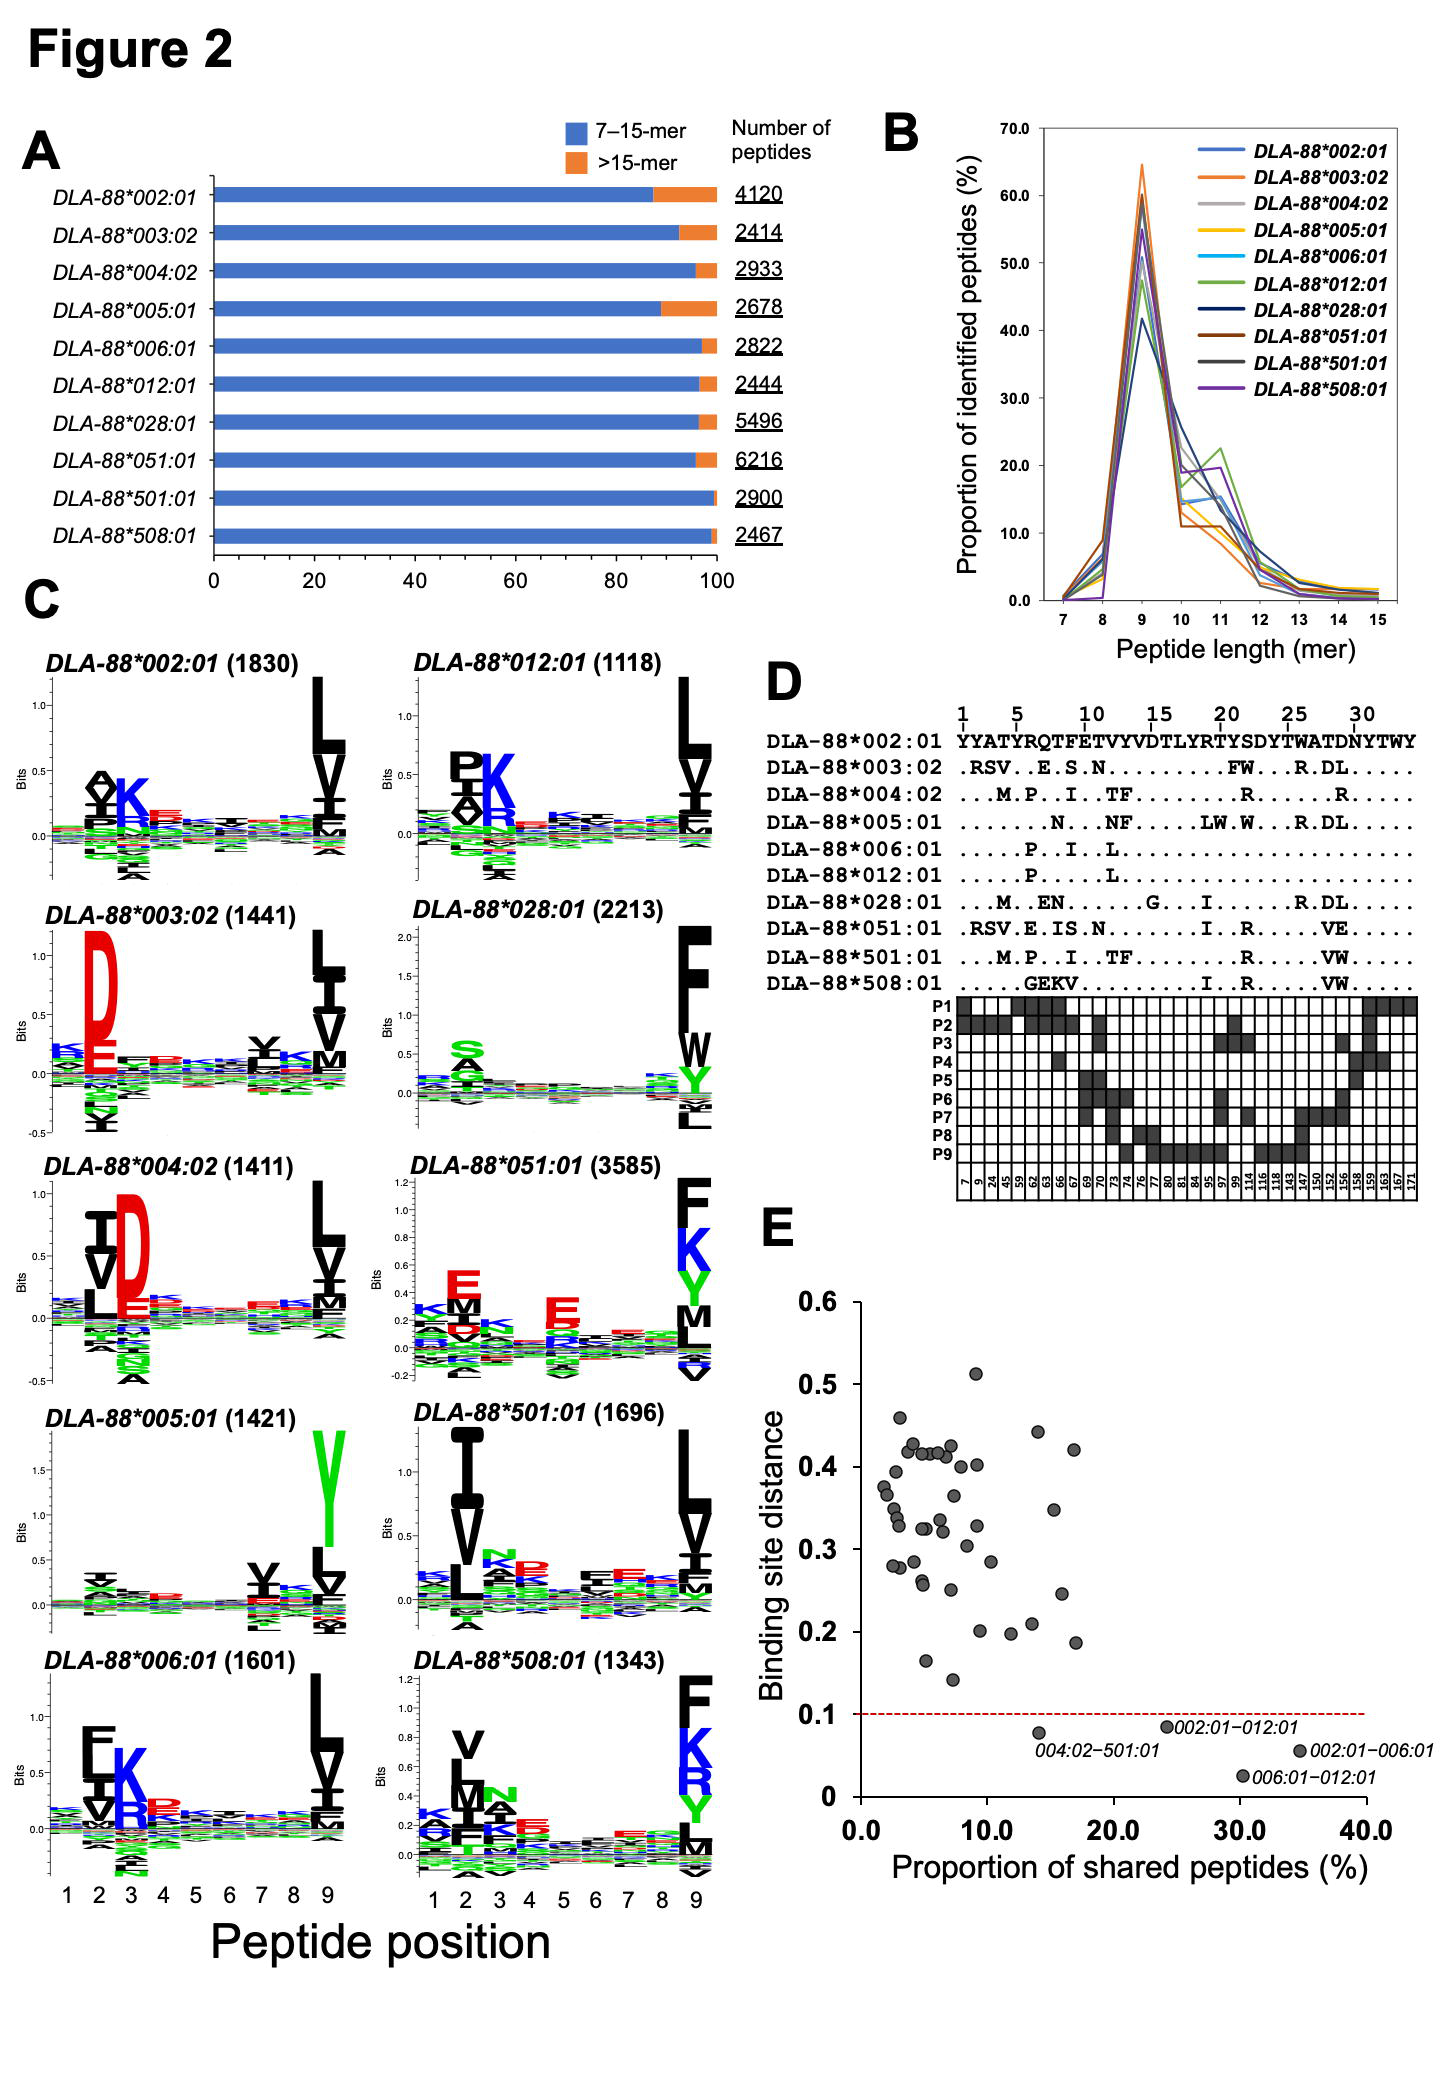
最终,作者在10个DLA-88等位基因中共鉴定到32,702条7–15个氨基酸的天然加工肽段,每个等位基因2,414–6,216条不等[2]。长度分布呈现经典MHC-I特征:9-mer占绝对主导(17,659条),其次为10-mer与11-mer;即便12–13-mer较长肽段,也保留了第2位与C末端的主导锚定残基。在所有等位基因中,第2位和第9位均为主要锚定位点:第9位以亮氨酸、缬氨酸、异亮氨酸、苯丙氨酸和甲硫氨酸等疏水残基为主(多数等位基因中占比超过92%),而第2位则表现出更强的等位基因依赖性变异[2]。
更有趣的是,作者把肽段共享程度与结合沟 pseudo-sequence 距离联系起来。基于Tadros等人提出的结合位点距离阈值(<0.1可较准确推断配体特征)[6],他们发现:当两个DLA-88等位基因的距离<0.1时,共享9-mer肽段比例中位数为27.2%(14.1–34.8%);而距离≥0.1时,中位数骤降至6.2%(2.1–17.0%)[2]。将这种关系用于扩展注释覆盖度后,215个已发表DLA-I等位基因中具有相近配体注释参考等位基因的数量从13个(6.1%)增加到54个(25.1%),且全部新增均为DLA-88等位基因[2]。
抗原加工偏好分析则进一步凸显了跨物种保守性。与人类HLA-I配体组一致,犬DLA-88结合肽在肽段两端及侧翼区域显著耗竭脯氨酸,U1和D1位点富集丙氨酸,C末端偏好疏水/芳香族残基[2][4]。这一结果暗示,蛋白酶体切割与ERAP介导的N端修剪在人与犬之间具有相似的底物偏好,也意味着基于人类数据训练的部分加工特征可以被迁移到犬类预测模型中。
在应用层面,作者从全部9-mer肽段中筛选出54条来自18个候选肿瘤抗原蛋白的肽段,这些蛋白在人类多种癌症中高表达,且部分已在犬肿瘤中被验证[2][7]。借助DoGA犬组织表达图谱[8],他们发现其中17个蛋白在胚胎或睾丸组织中表达最高,10个蛋白(AFP、SYCP3、SPESP1、SPO11、ATAD2、CEP55、KIF15、KIF18A、KIF2C、TTK)呈现强组织特异性(tau>0.85且SPM>0.9),提示其作为癌症疫苗靶点可能具有较好的安全性窗口[2]。
不过,这份图谱仍有明显边界。首先,10个高频等位基因来自日本犬群体,未必覆盖全球所有品种;其次,研究仅涉及DLA-88位点,尚未触及DLA-12/88L、DLA-64、DLA-79等其他DLA-I位点,更不用说DLA-II。此外,所有数据均来自KMeC这一黑色素瘤细胞系,细胞类型和肿瘤背景可能塑造出特定的抗原加工与呈递景观;质谱实验也没有展示MS1强度或谱图计数归一化,不同等位基因的肽段数量差异可能部分反映表达水平或免疫沉淀效率,而非单纯的结合沟容量差异。最后,54条候选肽段目前止步于表达谱筛选和与人/犬文献的交叉比对,尚未经过T细胞免疫原性实验验证。
从质谱免疫肽组学的角度看,这项工作有两个值得肯定的实验设计:其一是坚持使用犬源细胞表达单等位基因,从而直接获得由犬细胞蛋白质组自然加工产生的配体,而非像此前部分研究那样把人源细胞作为异种表达平台;其二是在严格检查CRAPome污染后仍保留了污染候选肽,并通过 motif 一致性证明这些肽段并非简单的IP非特异吸附。这两点对于任何从事非人物种免疫肽组学的实验室都有参考价值。反过来看,作者对β2M–88–SCD的验证主要依赖与Barth等人非融合型DLA-88*501:01数据的 motif 比较,未来若能补充结构生物学或TCR识别数据,将更有助于证明单链二聚体确实复现了天然pMHC-I的构象与免疫原性。
总的来说,这份覆盖10个高频DLA-88等位基因的免疫肽组图谱为犬类MHC-I配体预测、癌症肽疫苗设计以及人与犬之间的比较肿瘤免疫学提供了一个急需的实验基线。它提示了一个在人与犬之间颇为保守的抗原呈递与加工框架,也把DLA-88从“多态性很高但配体信息很少”的位点,变成了可以系统计算和靶向的分子。
参考文献
- [1] Sarkizova S, Klaeger S, Le PM, et al. A large peptidome dataset improves HLA class I epitope prediction across most of the human population. Nature biotechnology. 2020;38(2):199-209.
- [2] Miyamae J, Murakami K, Hemmi H. A monoallelic immunopeptidome atlas of 10 prevalent canine DLA-88 alleles. bioRxiv 2026. DOI: 10.64898/2026.10.06.756904.
- [3] Miyamae J, Okano M, Katakura F, et al. Large-scale polymorphism analysis of Dog Leukocyte Antigen Class I and Class II genes (DLA-88, DLA-12/88L and DLA-DRB1) and comparison of the haplotype diversity between breeds in Japan. Cells. 2023;12(5):809.
- [4] Abelin JG, Keskin DB, Sarkizova S, et al. Mass spectrometry profiling of HLA-associated peptidomes in mono-allelic cells enables more accurate epitope prediction. Immunity. 2017;46(2):315-326.
- [5] Barth SM, Schreitmüller CM, Proehl F, et al. Characterization of the canine MHC class I DLA-88* 50101 peptide binding motif as a prerequisite for canine T cell immunotherapy. PLoS One. 2016;11(11):e0167017.
- [6] Tadros DM, Racle J, Gfeller D. Predicting MHC-I ligands across alleles and species: how far can we go? Genome medicine. 2025;17(1):25.
- [7] Kaabinejadian S, Yari H, Cate S, et al. Presentation of identical tumor antigen peptides by canine and human MHC class I. iScience. 2026;29(6).
- [8] Hörtenhuber M, Hytönen MK, Mukarram AK, et al. The DoGA consortium expression atlas of promoters and genes in 100 canine tissues. Nature Communications. 2024;15(1):9082.
- [9] Nielsen M, Connelley T, Ternette N. Improved prediction of bovine leucocyte antigens (BoLA) presented ligands by use of mass-spectrometry-determined ligand and in vitro binding data. Journal of proteome research. 2018;17(1):559-567.
内容经AI校正和润色,审慎阅读