本文由WorkBuddy Agent撰写并直接通过WordPress API发布于笔者个人网站www.liangxiao.pro。内容可能存在不准确之处,仅供研究参考。
髓母细胞瘤是儿童最常见的恶性脑肿瘤,约占儿科中枢神经系统肿瘤的两成,按分子特征分为WNT、SHH、Group 3与Group 4四个亚型[1]。这个肿瘤的突变负荷极低,外显子测序给出的非同义突变中位数只有约0.35个/Mb[2],留给新抗原预测的原料本就有限,而预测候选中最终被证实具备免疫原性的比例通常只有6%到11%[3]——这是整个新抗原疫苗领域共同的尴尬,对髓母细胞瘤尤其如此。手术加放化疗的标准方案虽能换来生存,却常常以儿童的神经认知发育为代价,而免疫检查点抑制剂、溶瘤病毒与疫苗在这类肿瘤中至今没有拿出像样的临床数据。9月28日,广州医科大学附属第一医院Aimin Hui团队在bioRxiv贴出一项纯计算研究,把髓母细胞瘤的抗原地图从突变序列扩展到了非经典翻译区:从公开的配对转录组与HLA-I免疫肽组数据里,作者们清点出598个肿瘤限制性的非经典HLA-I配体,作为T细胞疗法的候选靶点库[4]。
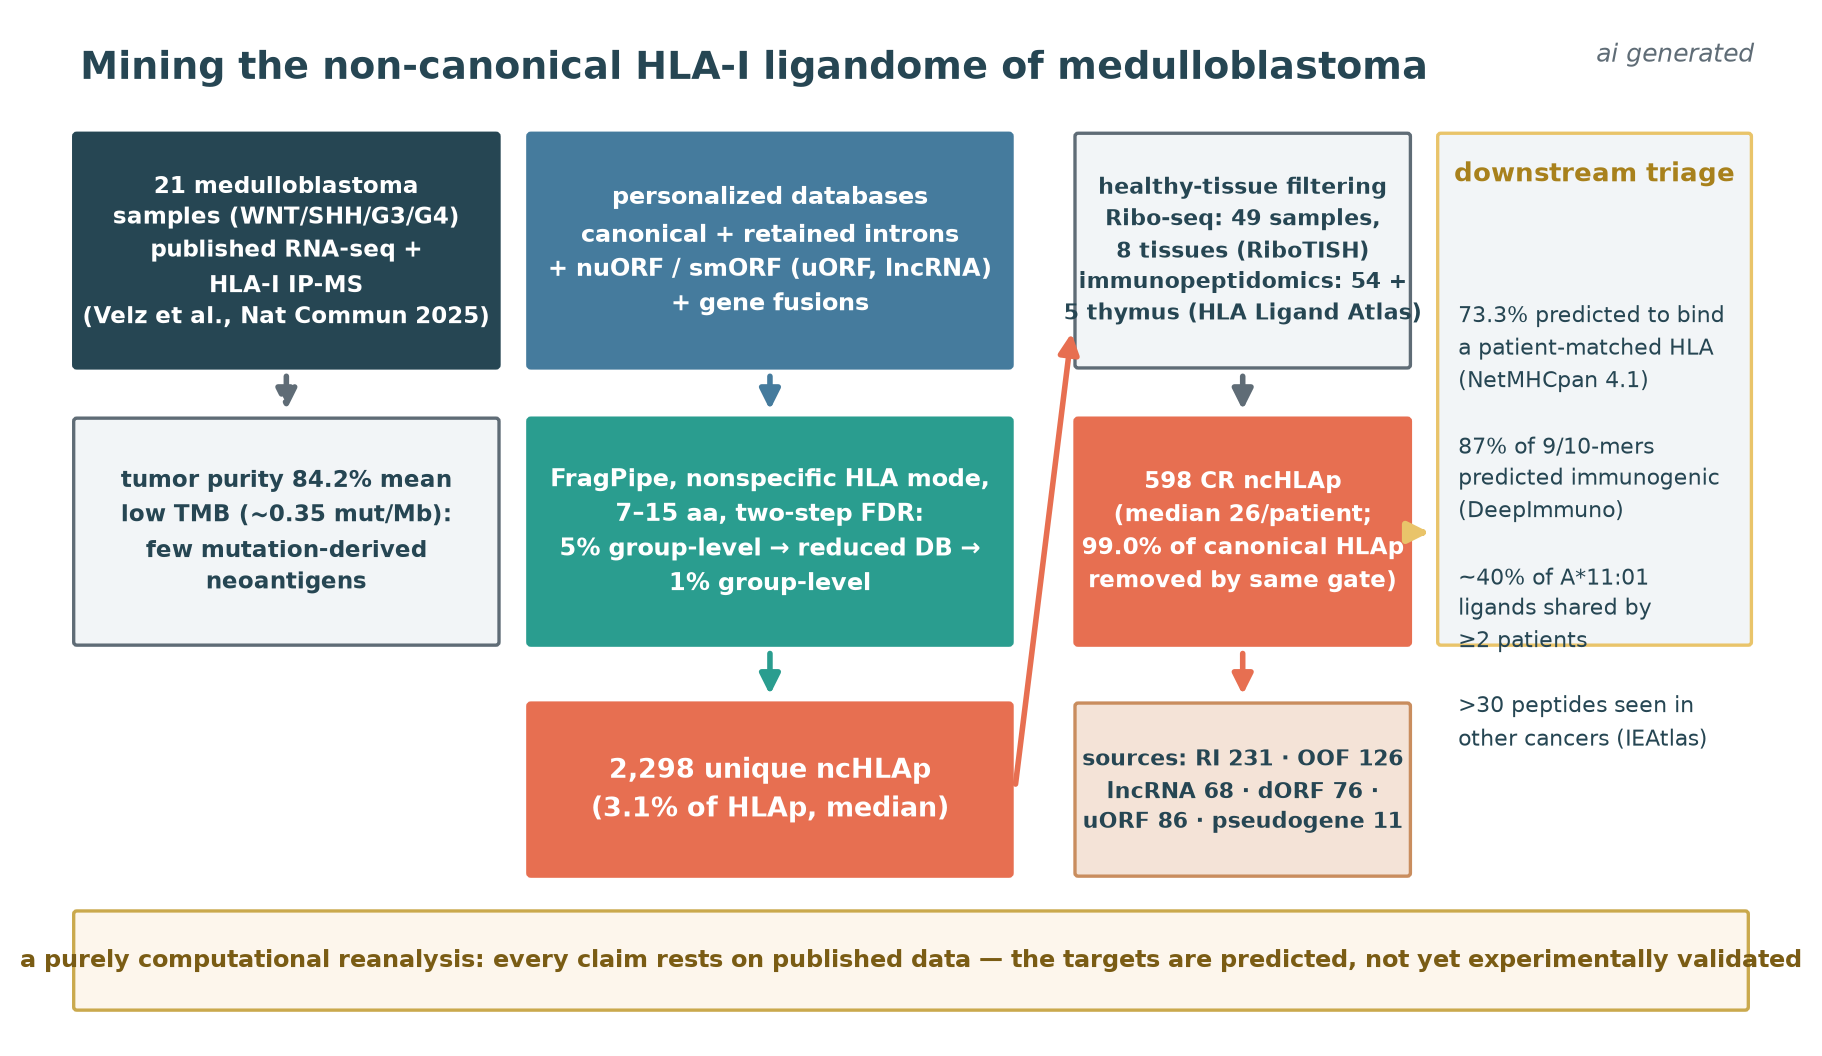
这项研究没有任何新测序,全部建筑在Velz等人2025年发表于Nature Communications的数据之上:21例髓母细胞瘤的RNA-seq与HLA-I免疫沉淀质谱,覆盖四个分子亚型,肿瘤纯度均值84.2%[5]。工程量集中在数据库的搭建上——对每例患者,作者把参照蛋白组与四类非经典来源拼成个性化检索库:kallisto与IRFinder双管线识别的retained introns、Broad研究所nuORF目录中未注释的开放阅读框[6]、Prensner等整理的lncRNA来源smORF与uORF[7],以及Arriba找出的基因融合断点两侧各30个氨基酸。质谱检索走FragPipe的非特异HLA模式,肽长限7到15个氨基酸,并采用两步FDR策略:先以组水平5%的PSM阈值在各个性化库中初筛,把命中的肽段汇总成缩减库,再以1%的组水平阈值回搜。这个设计针对的是免疫肽组学检索的两个老问题——数据库膨胀导致灵敏度损失,以及经典与非经典肽段分数分布不同导致的错误率偏移,Blakeley、Jagtap与Fritsche等人早有论述[8][9][10]。最终,21例样本共鉴定2298个独立的非经典HLA-I肽段,每例中位3622条HLA-I配体中非经典占0.47%到5.2%(中位3.1%);来源上5′uORF最多(611条),其后依次为retained introns(377条)、out-of-frame ORF(339条)与lncRNA(319条)。
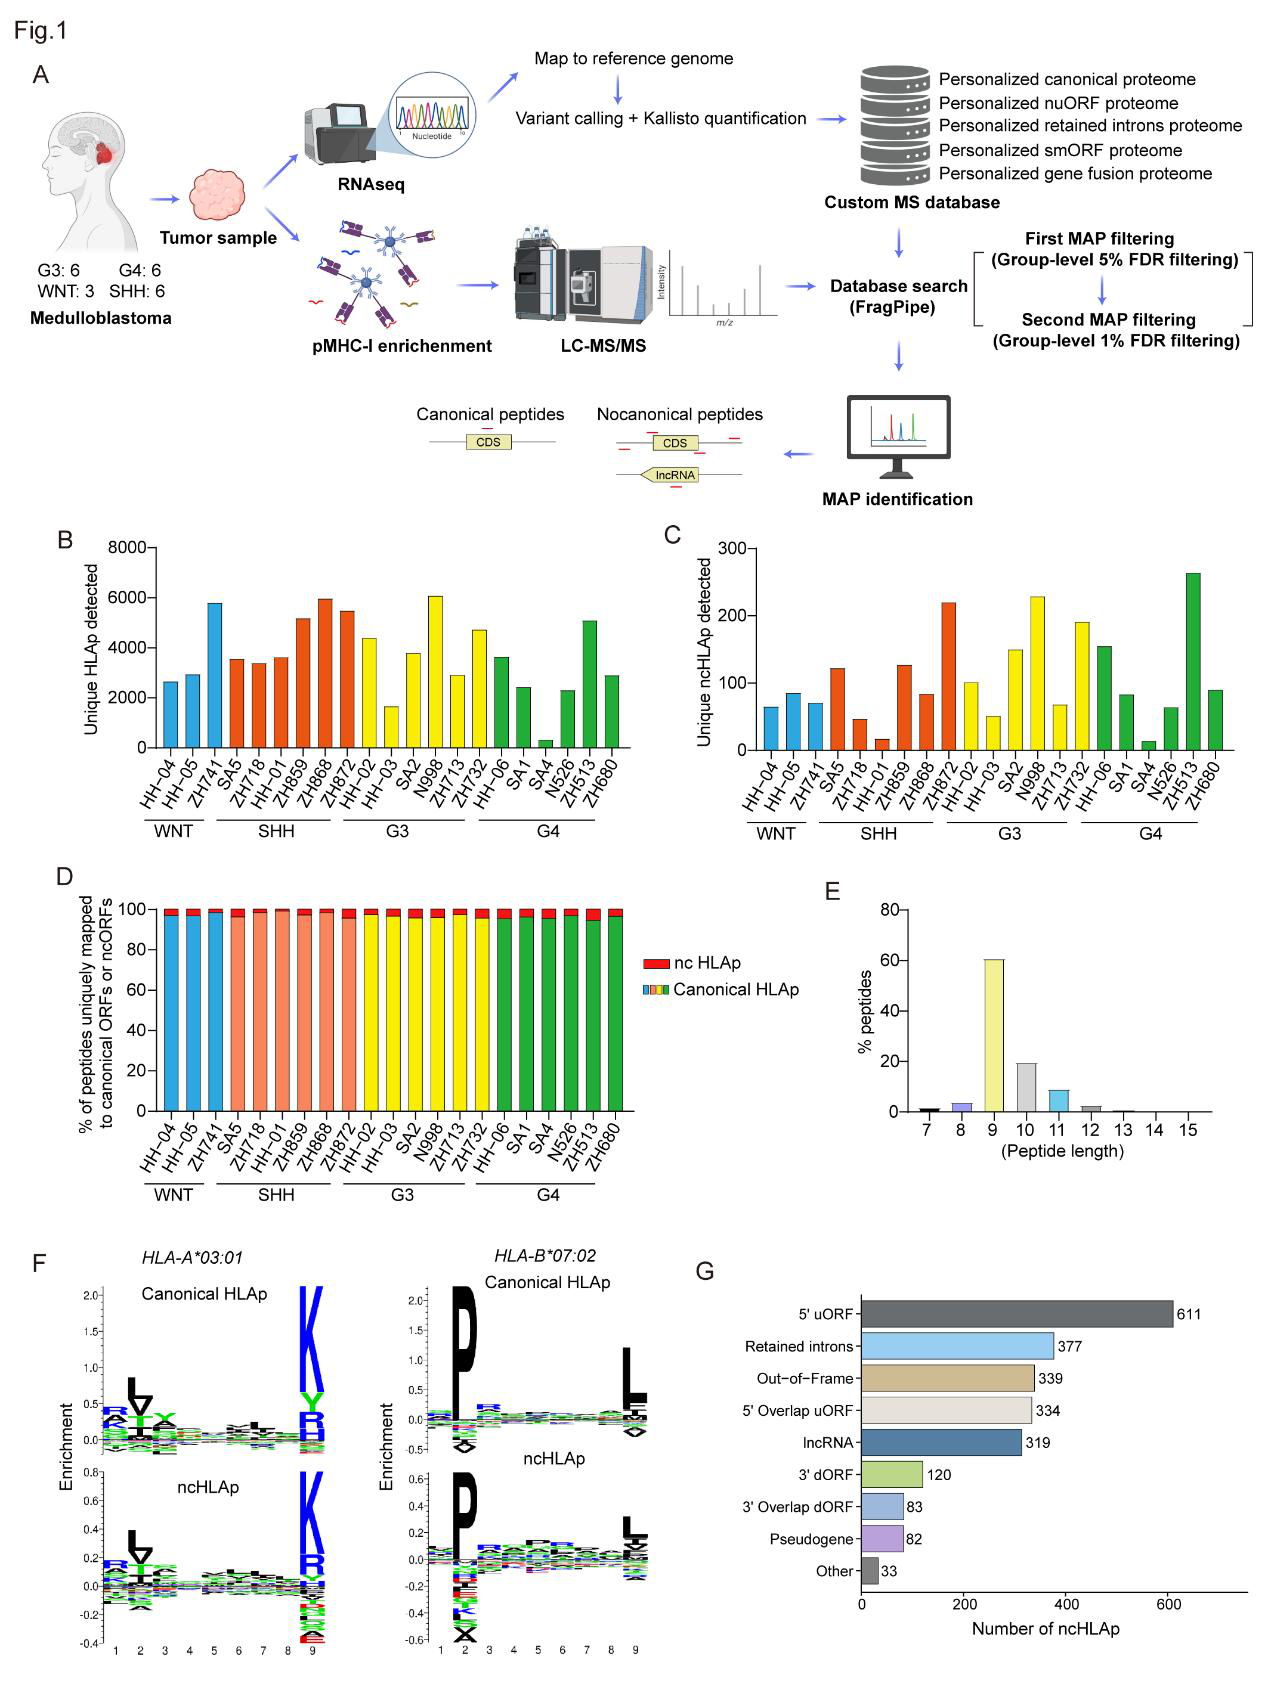
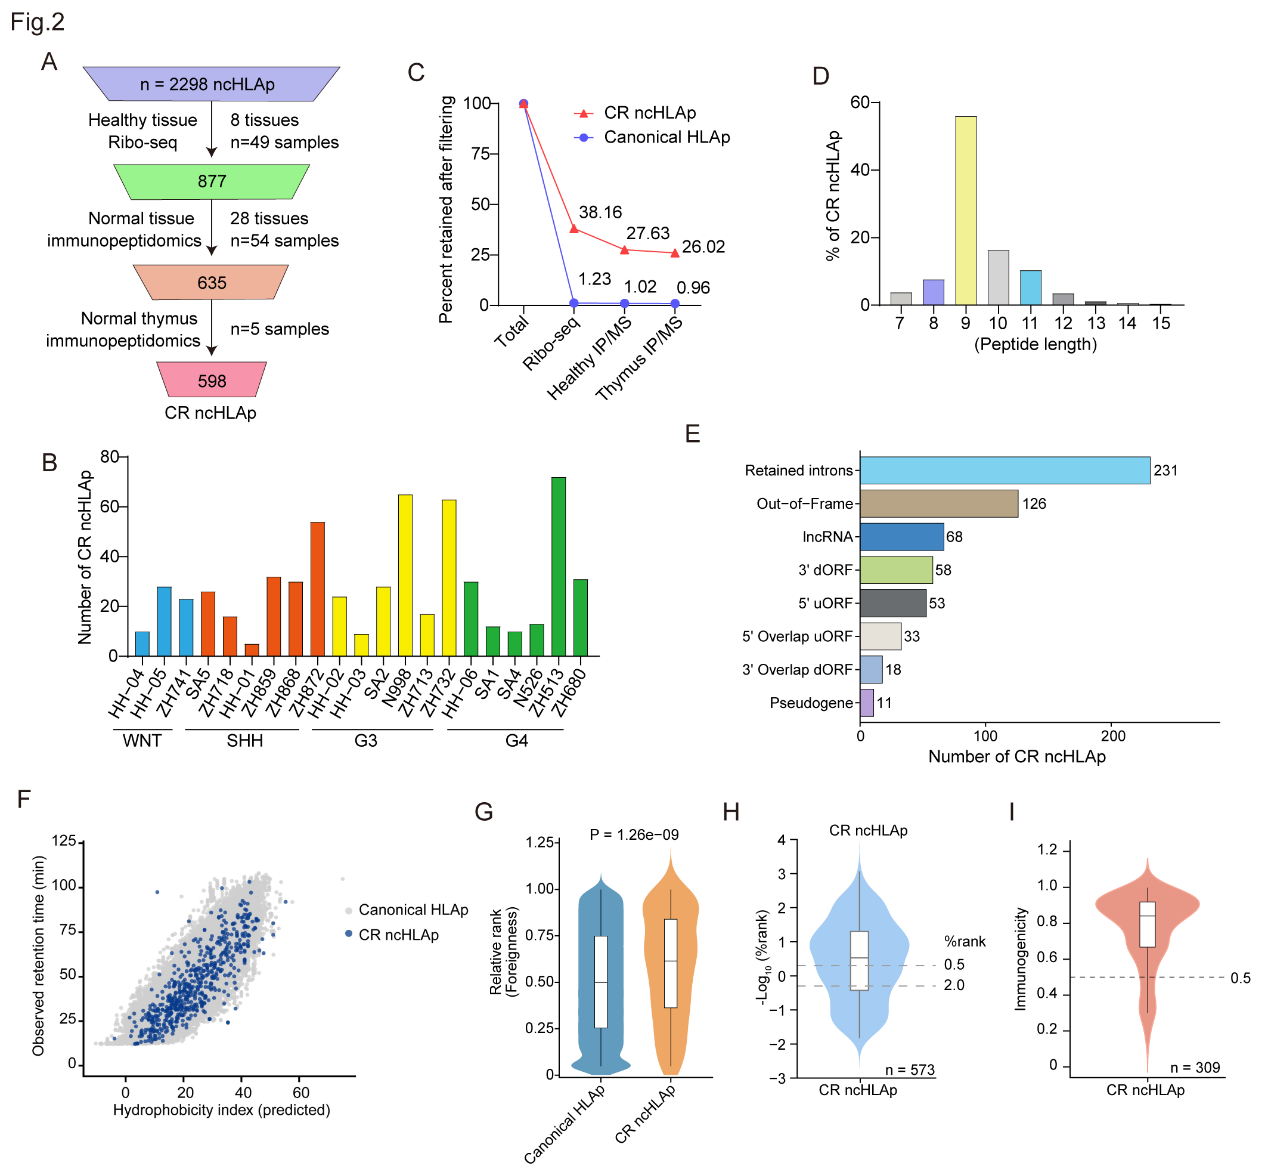
肿瘤限制性过滤是这篇文章真正的重心,也是最值得同行借鉴的部分。作者把候选依次对着三套正常组织数据排除:8种组织49例的核糖体测序,用RiboTISH预测正在翻译的ORF并视I/L为等价[11];28种组织54例的正常组织免疫肽组与5例正常胸腺免疫肽组,来自HLA Ligand Atlas[12]。2298条候选经此漏斗剩598条cancer-restricted ncHLAp,每例中位26条。
| 过滤步骤 | 依据 | CR ncHLAp 剩余 | 经典 HLAp 剩余 |
|---|---|---|---|
| 初筛 | 2298 条非经典候选 | 100%(2298 条) | 100% |
| Ribo-seq 排除 | 8 种组织 49 例(RiboTISH) | 38.2%(877 条) | 1.23% |
| 正常组织免疫肽组排除 | 28 种组织 54 例 | 27.6%(635 条) | 1.02% |
| 胸腺免疫肽组排除 | 5 例正常胸腺 | 26.0%(598 条) | 0.96% |
管线本身的质量有对照可查:同一套过滤器把99.04%的经典HLA-I配体清除——这些配体的来源ORF在健康组织中本就有翻译证据,过滤器如预期将其拦截,说明漏斗足以把”正常组织也在翻译和呈递”的部分挡在门外。旁证还有两条:CR ncHLAp的疏水性-保留时间分布与经典配体无差别,说明这些鉴定不是色谱行为异常的假阳性;其相对foreignness显著更高(P=1.26×10⁻⁹),73.3%被NetMHCpan 4.1预测可结合患者自身的HLA,87%的9-mer与10-mer被DeepImmuno判为免疫原性大于0.5。
与突变新抗原的个体特异性不同,这批非经典配体有明显的共享倾向:以队列中最常见的HLA-A11:01为例,约40%的限制性肽段被两名以上患者共享;检出频次最高的30条CR ncHLAp在IEAtlas覆盖的15种癌症的至少一种中被独立检出[13],等于给这些鉴定加了一层跨癌种、跨实验室的旁证,作者还用PRM合成肽谱图复核了代表肽段。来源基因里有TOPBP1——一条out-of-frame来源的十肽在7例患者中检出并强结合A11:01——以及组蛋白H1-2、MTUS1、FYN的lncRNA转录本与假基因HERC2P2,30个代表来源基因中过半与肿瘤发生相关。至于这些肽为何出现,作者用rMATS对照GTEx小脑做了可变剪接分析:肿瘤特异的剪接事件确实大量存在,但事件负荷与每例CR ncHLAp数量之间没有相关性。这个阴性结果被作者如实报告并写进了讨论:剪接异常可能是部分肽段的成因,却不是总负荷的决定因素,机制问题保持开放。
在笔者看来,这篇文章的价值与边界同样清楚。方法学上它没有新东西,管线整体移植自Ely等人2025年发表于Science的胰腺癌隐秘抗原工作[14]——Ely等已证明这类抗原可被T细胞识别;本文的贡献在于把同一套搜索与过滤逻辑应用到髓母细胞瘤这个低突变、免疫治疗几乎无解的癌种,把”非经典来源补齐低TMB肿瘤靶点库”这条路线又往前推了一站。这条路线与既往”非编码区是可靶向肿瘤特异抗原主要来源”的结论一脉相承[15][16],也与Apavaloaei等在黑色素瘤和NSCLC中的观察方向一致:肿瘤优先呈递的抗原大头来自未突变的基因组,而非SNV与indel[17]。局限也写在明面上:没有做任何体外或体内免疫原性实验,作者自己列为第一条限制;”cancer-restricted”的定义依赖正常组织数据的覆盖深度,发育期小脑既无核糖体测序也无免疫肽组对照,而髓母细胞瘤恰恰起源于发育中的后颅窝,这个分母的乐观程度需要打折。数据层面还有一层值得注意:第一作者隶属广州的EnCureGen Pharma,研究由该公司资助,靶点库的最终用途不难猜,但就本篇而言数据与代码全部公开,倒也无从指摘。从质谱的角度说,组水平FDR与两步检索已是识别非经典配体的通行处理,真正决定这类图谱下限的,是碎片级证据的强度与正常组织对照的深度——前者这篇文章用PRM补了样例,后者则取决于HLA Ligand Atlas这类良性参照还在继续增长的速度[12]。对儿童低突变肿瘤而言,非经典配体几乎是唯一还能大幅扩容的靶点池,个体化mRNA疫苗在成人癌种中刚刚交出可持续T细胞应答的成绩单[18],而从”图谱里有598条预测可结合、可免疫的肽”到”能进临床的疫苗或TCR-T”,中间还隔着免疫原性验证与安全性分母两道门槛,这篇预印本只是在第一道门槛前画好了候选名单。
参考文献
- Taylor MD, Northcott PA, Korshunov A, et al. Molecular subgroups of medulloblastoma: the current consensus. Acta Neuropathol 2012;123:465-472. doi:10.1007/s00401-011-0922-z
- Pugh TJ, Weeraratne SD, Archer TC, et al. Medulloblastoma exome sequencing uncovers subtype-specific somatic mutations. Nature 2012;488:106-110. doi:10.1038/nature11329
- Wells DK, van Buuren MM, Dang KK, et al. Key parameters of tumor epitope immunogenicity revealed through a consortium approach improve neoantigen prediction. Cell 2020;183:818-829. doi:10.1016/j.cell.2020.09.015
- Zheng N, Xu Y, Mai W, Hui A. Integrated immunopeptidomics and transcriptomics reveal a cancer-restricted non-canonical HLA class I ligandome in medulloblastoma. bioRxiv 2026. doi:10.64898/2026.09.26.754718
- Velz J, Freudenmann LK, Medici G, et al. Mapping naturally presented T cell antigens in medulloblastoma based on integrative multi-omics. Nat Commun 2025;16:1364. doi:10.1038/s41467-025-56268-0
- Ouspenskaia T, Law T, Clauser KR, et al. Unannotated proteins expand the MHC-I-restricted immunopeptidome in cancer. Nat Biotechnol 2022;40:209-217. doi:10.1038/s41587-021-01021-3
- Prensner JR, Enache OM, Luria V, et al. Noncanonical open reading frames encode functional proteins essential for cancer cell survival. Nat Biotechnol 2021;39:697-704. doi:10.1038/s41587-020-00806-2
- Blakeley P, Overton IM, Hubbard SJ. Addressing statistical biases in nucleotide-derived protein databases for proteogenomic search strategies. J Proteome Res 2012;11:5221-5234. doi:10.1021/pr300411q
- Jagtap P, Goslinga J, Kooren JA, et al. A two-step database search method improves sensitivity in peptide sequence matches for metaproteomics and proteogenomics studies. Proteomics 2013;13:1352-1357. doi:10.1002/pmic.201200352
- Fritsche J, Kowalewski DJ, Backert L, et al. Pitfalls in HLA ligandomics—how to catch a Li(e)gand. Mol Cell Proteomics 2021;20:100110. doi:10.1016/j.mcpro.2021.100110
- Chothani SP, Adami E, Widjaja AA, et al. A high-resolution map of human RNA translation. Mol Cell 2022;82:2885-2899. doi:10.1016/j.molcel.2022.06.023
- Marcu A, Bichmann L, Kuchenbecker L, et al. HLA Ligand Atlas: a benign reference of HLA-presented peptides to improve T-cell-based cancer immunotherapy. J Immunother Cancer 2021;9:e002071. doi:10.1136/jitc-2020-002071
- Cai Y, Lv D, Li D, et al. IEAtlas: an atlas of HLA-presented immune epitopes derived from non-coding regions. Nucleic Acids Res 2023;51:D409-D417. doi:10.1093/nar/gkac776
- Ely ZA, Kulstad ZJ, Gunaydin G, et al. Pancreatic cancer-restricted cryptic antigens are targets for T cell recognition. Science 2025;388:eadk3487. doi:10.1126/science.adk3487
- Laumont CM, Vincent K, Hesnard L, et al. Noncoding regions are the main source of targetable tumor-specific antigens. Sci Transl Med 2018;10:eaau5516. doi:10.1126/scitranslmed.aau5516
- Camarena ME, Theunissen P, Ruiz M, et al. Microproteins encoded by noncanonical ORFs are a major source of tumor-specific antigens in a liver cancer patient meta-cohort. Sci Adv 2024;10:eadn3628. doi:10.1126/sciadv.adn3628
- Apavaloaei A, Zhao Q, Hesnard L, et al. Tumor antigens preferentially derive from unmutated genomic sequences in melanoma and non-small cell lung cancer. Nat Cancer 2025;6:1419-1437. doi:10.1038/s43018-025-00979-2
- Sahin U, Schmidt M, Derhovanessian E, et al. Individualized mRNA vaccines evoke durable T cell immunity in adjuvant TNBC. Nature 2026;651:1088-1096. doi:10.1038/s41586-025-10004-2
内容经AI校正和润色,审慎阅读