原文见笔者个人网站 www.liangxiao.pro。内容经AI校正和润色,可能存在不准确之处,仅供研究参考。
MHC限制性写在TCR的胚系序列里。
T细胞受体只认肽不认蛋白,但前提是这条肽必须摆在MHC分子的结合槽里——这就是MHC限制性,适应性免疫学的承重墙之一。墙为什么立得住,几十年来却始终悬而未决。一派观点继承Jerne的猜想[2],认为胚系编码的V基因与MHC共进化,TCR天生就有与MHC结合的”内置亲和力”,证据是大量结构中CDR1/CDR2环倾向于搭在MHC α螺旋上[4][5],甚至有研究表明胚系编码的保守氨基酸直接控制着TCR–MHC接触并影响胸腺选择[6];另一派则认为这种偏置并不内在,而是胸腺阳性选择与CD4/CD8共受体过滤的产物[7] ^[4]^。争论卡在一个技术死角[8]:迄今所有野生型TCR–pMHC结构都带着完整的CDR3环和一条特定肽,而CDR3既触肽也触MHC,谁也说不清胚系框架本身到底贡献了什么。斯坦福Garcia实验室的新预印本给出了迄今最直接的回答:把CDR3的肽特异性真正抹掉,剩下的胚系骨架依然以与野生型几乎相同的姿态趴在MHC上[1]。
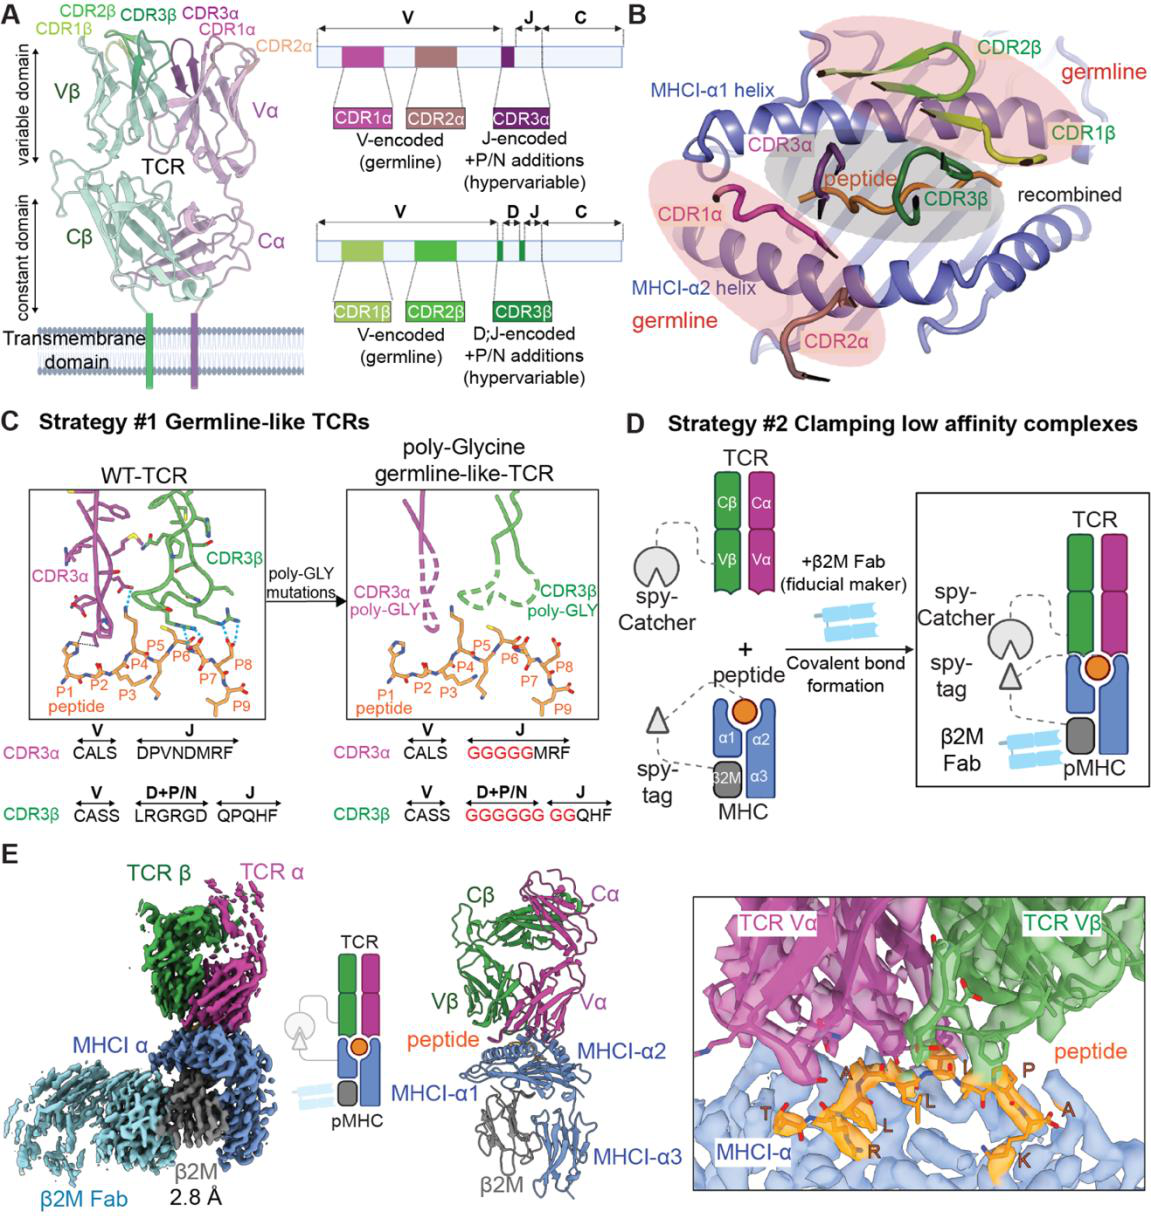
实验设计的巧妙之处在于两步工程化。第一步是”胚系样”TCR:将TCR156(TRAV12-2/TRBV9,识别肿瘤抗原PAP–HLA-A*02)的CDR3α与CDR3β分别替换为聚甘氨酸连接子——甘氨酸无侧链、构象自由,理论上无法与肽或MHC形成序列特异性接触;替换后亲和力从47微摩尔掉到数百微摩尔,已达SPR检测下限。第二步是”分子钳”:用SpyTag–SpyCatcher把TCR与单链pMHC物理拴连,再加一段Fab作成像基准,把本会转瞬即逝的超低亲和力复合物”钉”在冷冻电镜样品里。这套方法先在已有晶体结构的AS4.2–PRPF3–HLA-B*27体系上验证,交叉角与晶体结构只差约5度,证明钳制不引入伪影[1]。
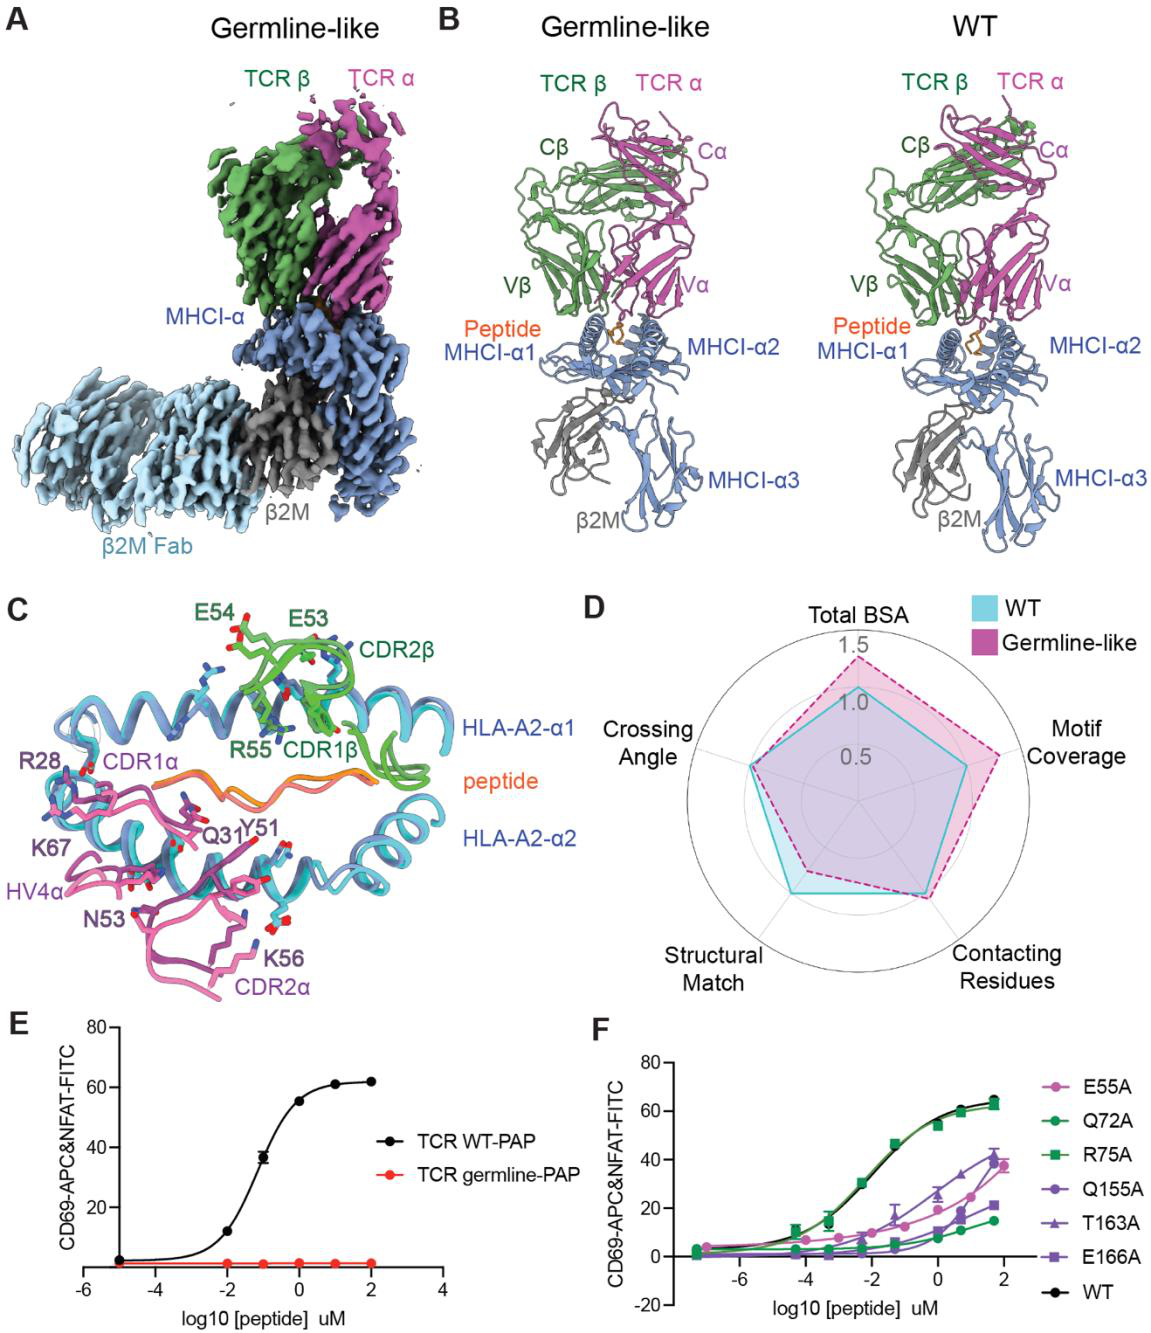
结果是干净利落的:胚系样TCR156与野生型TCR156的对接几何几乎重合,Cα RMSD仅1.18埃,交叉角62.3度对64.3度,埋藏表面积与接触残基数也大体相当[1]。更关键的对照是把四种序列迥异的肽放进同一个HLA-A*02——PAP、MART-1十聚体、NY-ESO-1九聚体,乃至只保留P2/P9锚定残基的聚丙氨酸变体——胚系样TCR的对接姿态在四者之间高度保守,交叉角锁定在61至72度的窄带内,CDR1/CDR2与MHC螺旋的氢键网络在四个结构中原样复现[1]。有意思的是Gln31α:这条胚系残基反复伸进肽结合槽,以主链氢键”触摸”肽骨架而不读侧链,等于给TCR装了一个不认序列、只认构象的肽传感器。功能层面,聚甘氨酸CDR3的受体确实不能被同源肽激活,确认CDR3–肽接触是信号转导的必要条件;但意外的插曲是,胚系样TCR156对交叉反应肽MART1-91表现出约62%的弱激活,说明只要胚系框架把对接几何摆对,没有CDR3的受体也有微弱的信号潜力[1]。
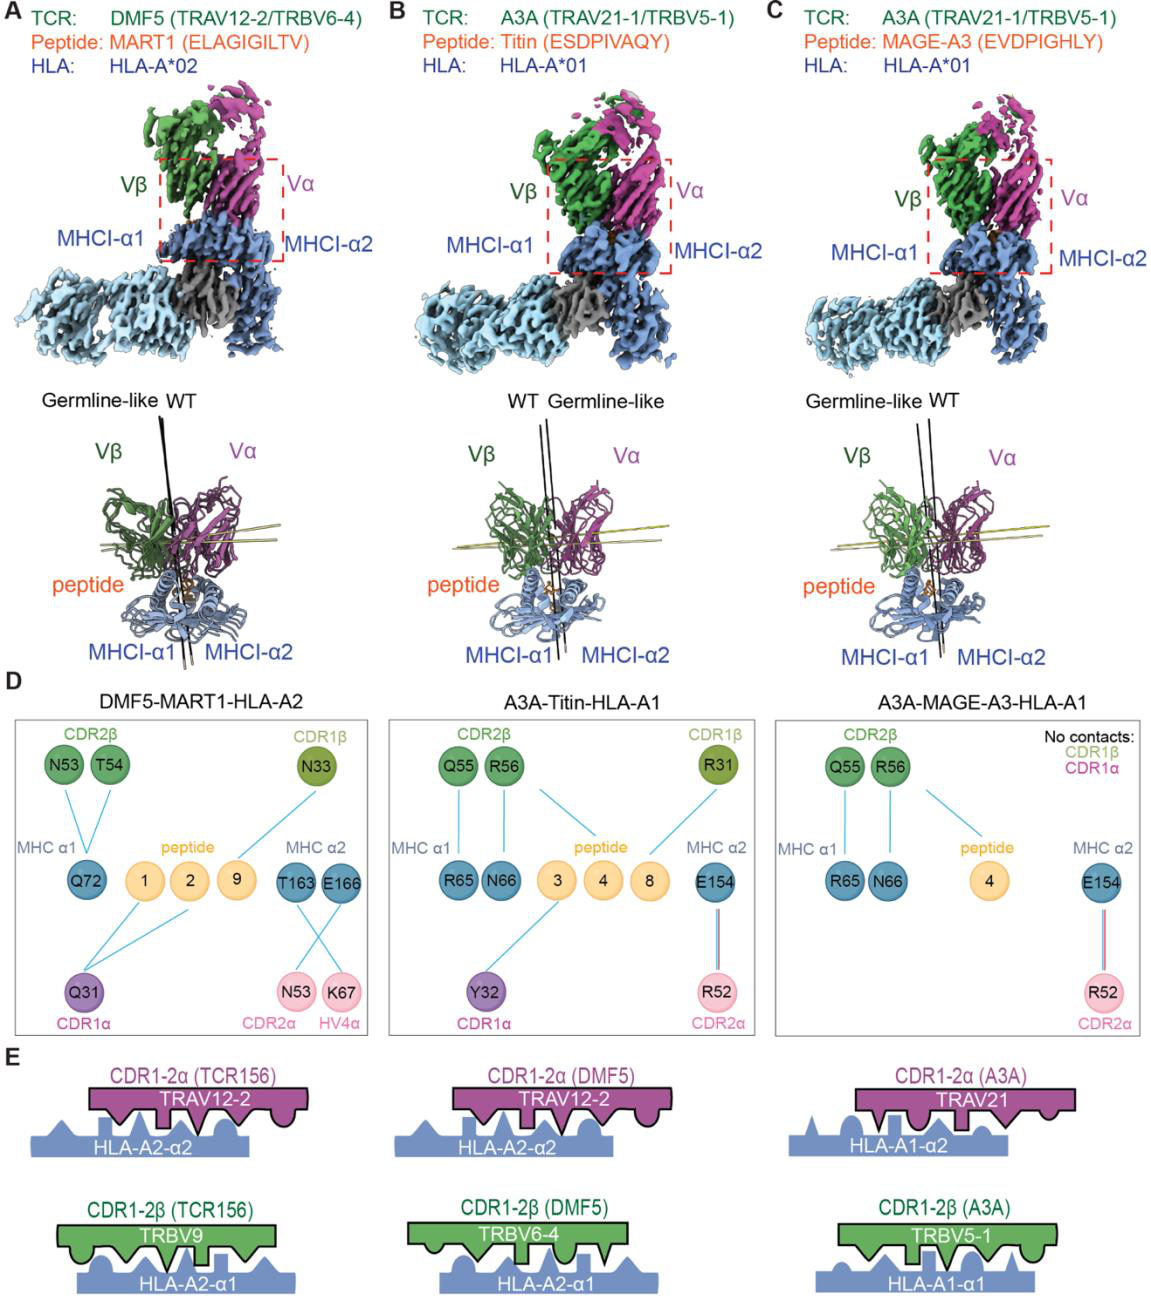
作者随后把策略推广到三个TCR谱系:同用TRAV12-2但配不同TRBV的DMF5,以及用TRAV21/TRBV5-1识别HLA-A*01上MAGE-A3与Titin的A3A。胚系样版本全部复现野生型的交叉角,而三个谱系的接触网络各不相同——A3A的Arg52α搭HLA-A*01 α2螺旋上的Glu154,TCR156与DMF5共享的TRAV12-2则锁定HLA-A*02 α2螺旋的Glu166与Thr163[1]。规律浮现出来:α链触α2螺旋、β链触α1螺旋的分工一致,具体的氢键蓝图由Vα–Vβ组合共同决定,Vβ像一个几何调节器改变异二聚体在pMHC表面的落点。
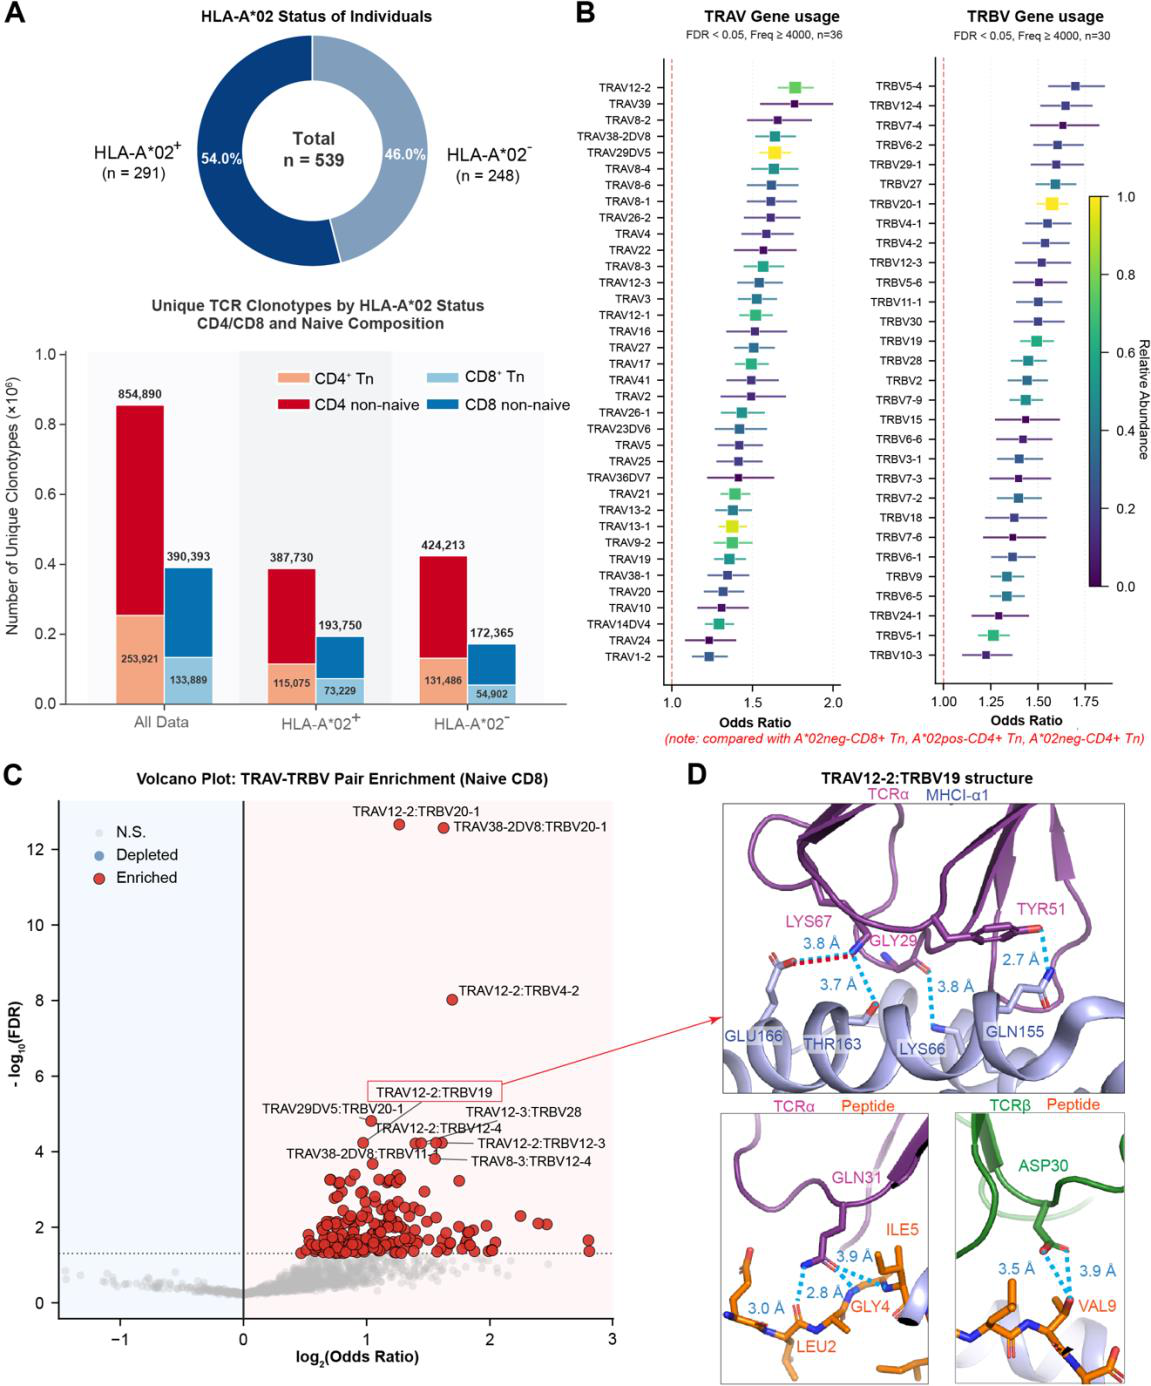
结构之外,作者在539名个体的TCR测序数据里寻找群体水平的回声:按HLA-A*02阳性与否分层,初生CD8库中TRAV12-2等V基因显著富集,TRAV12-2/TRBV20-1等配对模式呈非随机分布——而TRAV12-2正是本研究两个胚系样受体共用的Vα[1]。结构与库数据就此合流。
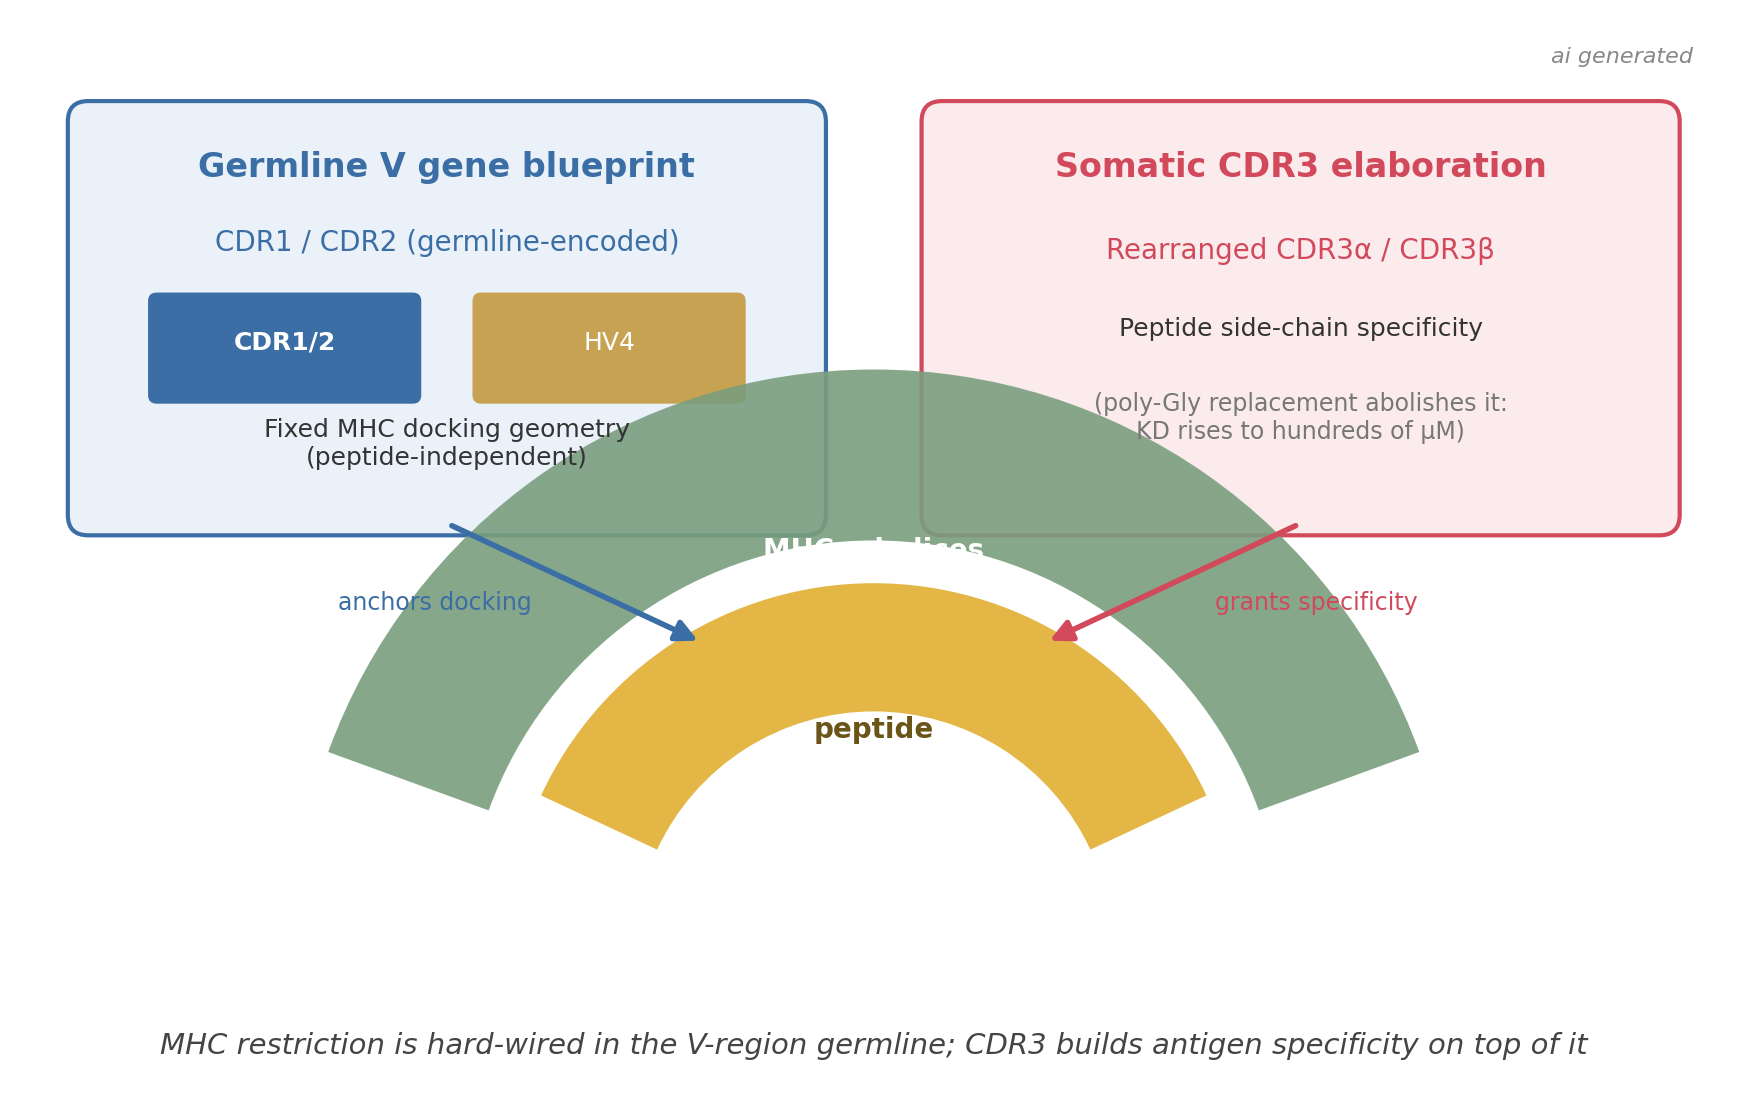
这项工作把”胚系偏置”从相关性推断升级为直接的因果性结构证据,意义不限于争论的收束。Garcia实验室自己的讨论部分点明了实际用途:目前主流的TCR特异性预测几乎全部押在CDR3–肽配对上,很少把胚系约束当作先验;如果V区序列就能约束对接几何,那么预测问题可以先在胚系层面剪枝,再交给CDR3去精读肽段[1]。这一点对免疫监测和TCR疗法的序列设计是实打实的减维。
当然,证据链上留有一个作者自己诚实标出的缺口:本研究用到的TCR都是从胸腺选择中幸存下来的成熟受体,胚系样改造只是移除了CDR3的肽接触,无法完全排除”胚系–MHC兼容性”部分是选择史的签名而非独立于选择的V基因属性——要一锤定音,恐怕需要用未经历选择的合成V库来做同样的结构实验[1]。另外,分子钳以长连接子拴连伙伴分子,虽经B*27体系验证无伪影,对更弱的界面仍需保持警觉。库分析给出的是关联而非因果,分层只覆盖了HLA-A*02一个等位基因。这些都是可以理解的边界,不影响主结论的成立。
回望1988年Davis与Bjorkman提出”一个受体、两项功能”的假说时,胚系与体细胞分工的划分还只是结构统计的暗示[3];三十七年后,这项研究用七个低温电镜结构与一条群体遗传学曲线,把分工写成了可以放进序列先验里的规则。对做TCR–pMHC预测的人而言,这大概意味着模型该把V区当作坐标系的骨架,而不是与CDR3平权的又一段输入。
- Wang N, Borowska MT, Jude KM, Chen X, Wang C, Xiang X, et al. MHC restriction is structurally encoded by the T cell receptor germline. bioRxiv 2026. DOI: 10.64898/2026.09.24.754241
- Jerne NK. The somatic generation of immune recognition. Eur J Immunol 1971;1:1–9. DOI: 10.1002/eji.1830010102
- Davis MM, Bjorkman PJ. T-cell antigen receptor genes and T-cell recognition. Nature 1988;334:395–402. DOI: 10.1038/334395a0
- Rudolph MG, Stanfield RL, Wilson IA. How TCRs bind MHCs, peptides, and coreceptors. Annu Rev Immunol 2006;24:419–466. DOI: 10.1146/annurev.immunol.23.021704.115658
- Marrack P, Scott-Browne JP, Dai S, Gapin L, Kappler JW. Evolutionarily conserved amino acids that control TCR–MHC interaction. Annu Rev Immunol 2008;26:171–203. DOI: 10.1146/annurev.immunol.26.021607.090421
- Scott-Browne JP, White J, Kappler JW, Gapin L, Marrack P. Germline-encoded amino acids in the αβ T-cell receptor control thymic selection. Nature 2009;458:1043–1046. DOI: 10.1038/nature07812
- Van Laethem F, Tikhonova AN, Singer A. MHC restriction is imposed on a diverse T cell receptor repertoire by CD4 and CD8 co-receptors during thymic selection. Trends Immunol 2012;33:210–217. DOI: 10.1016/j.it.2012.05.006
- Rossjohn J, Gras S, Miles JJ, Turner SJ, Godfrey DI, McCluskey J. T cell antigen receptor recognition of antigen-presenting molecules. Annu Rev Immunol 2015;33:169–200. DOI: 10.1146/annurev-immunol-032414-112334
内容经AI校正和润色,审慎阅读