原文见笔者个人网站 www.liangxiao.pro。内容经AI校正和润色,可能存在不准确之处,仅供研究参考。
经典的 MHC-I 免疫肽组学通常建立在一条经验之上:等位基因的结合槽有清晰的锚定残基,P2 与 C 端各守其位,预测器据此给候选肽排序。鸡 B21 单倍型的 BF2*21:01 恰好是对这条经验的正面挑战——它的结合槽会重塑自身,允许肽段 P2 与 Pc-2 两个锚定位置上的残基协同变化,三个锚定位却写不出一个简单 motif。剑桥大学 Kaufman 实验室十一月初在 eLife 上线的工作把这个问题做了一次彻底的方法学盘点,用复折叠、晶体结构、取代肽库和细胞系免疫肽组学四类数据回答了一个此前只有零散答案的问题:一个泛结合的 MHC-I 分子,究竟凭什么既装得下宽肽库,又留得住偏好[1]。鸡 MHC 本身是极简系统,单一显性表达的 I 类与 II 类基因使等位基因层面的解释天然干净[2]。
层级现象是这项工作的引子。B21 红细胞表面的 I 类分子比 B4、B15、B12、B19 等单倍型低约十倍,而低表达等位基因的肽库更宽,并与马立克氏病抗性等经济性状相关;其他单倍型的 BF2 分子给出以八肽为主的清晰motif,而 B21 的肽段长短杂陈、几乎看不出锚定[2][3]。人类 I 类分子同样呈现表达水平与预测肽库宽度的负相关,由此有了泛结合型与专精型的假说:低表达泛结合者广谱抗病原,高表达专精者靠少数特殊肽段取胜[4]。tapasin 依赖程度的层级与之呼应[5],并在 HIV 感染的疾病进展数据中得到支持——不依赖 tapasin、肽库更宽的 HLA-B 分子对应更好的病毒控制;不过方向与鸡的直觉相反,人类的“精英控制”等位基因恰恰是高表达的专精型[6]。II 类分子的泛结合层级在人群层面也有报道[7]。
新工作补上的是数据细节。作者用体外复折叠加分子排阻色谱定义“装配”,对单肽、单取代与双取代肽库做热稳定性测量、晶体结构与建模,其中 MALDI-TOF 用于肽库初筛,LC-MS/MS 给出氨基酸身份与位置的无歧义判定;细胞端则对 B21 细胞系 AVOL-1 的 I 类分子做 F21-2 免疫亲和提取,Q-Exactive 与 TripleTOF 双平台 LC-MS/MS,PEAKS 7 检索鸡 UniProt 与马立克氏病病毒六框翻译库,按 1% FDR 过滤[1]。晶体结构一部分承自早年工作,一部分是本文新解,与分子模型一起把每次复折叠的成败落到空间冲突上[8]。这套设计的要点在于把“分子能结合什么”与“细胞实际呈递什么”并置:体外体系没有细胞的质控,两者本来就不该给出完全相同的结果,而差异本身就是信息。
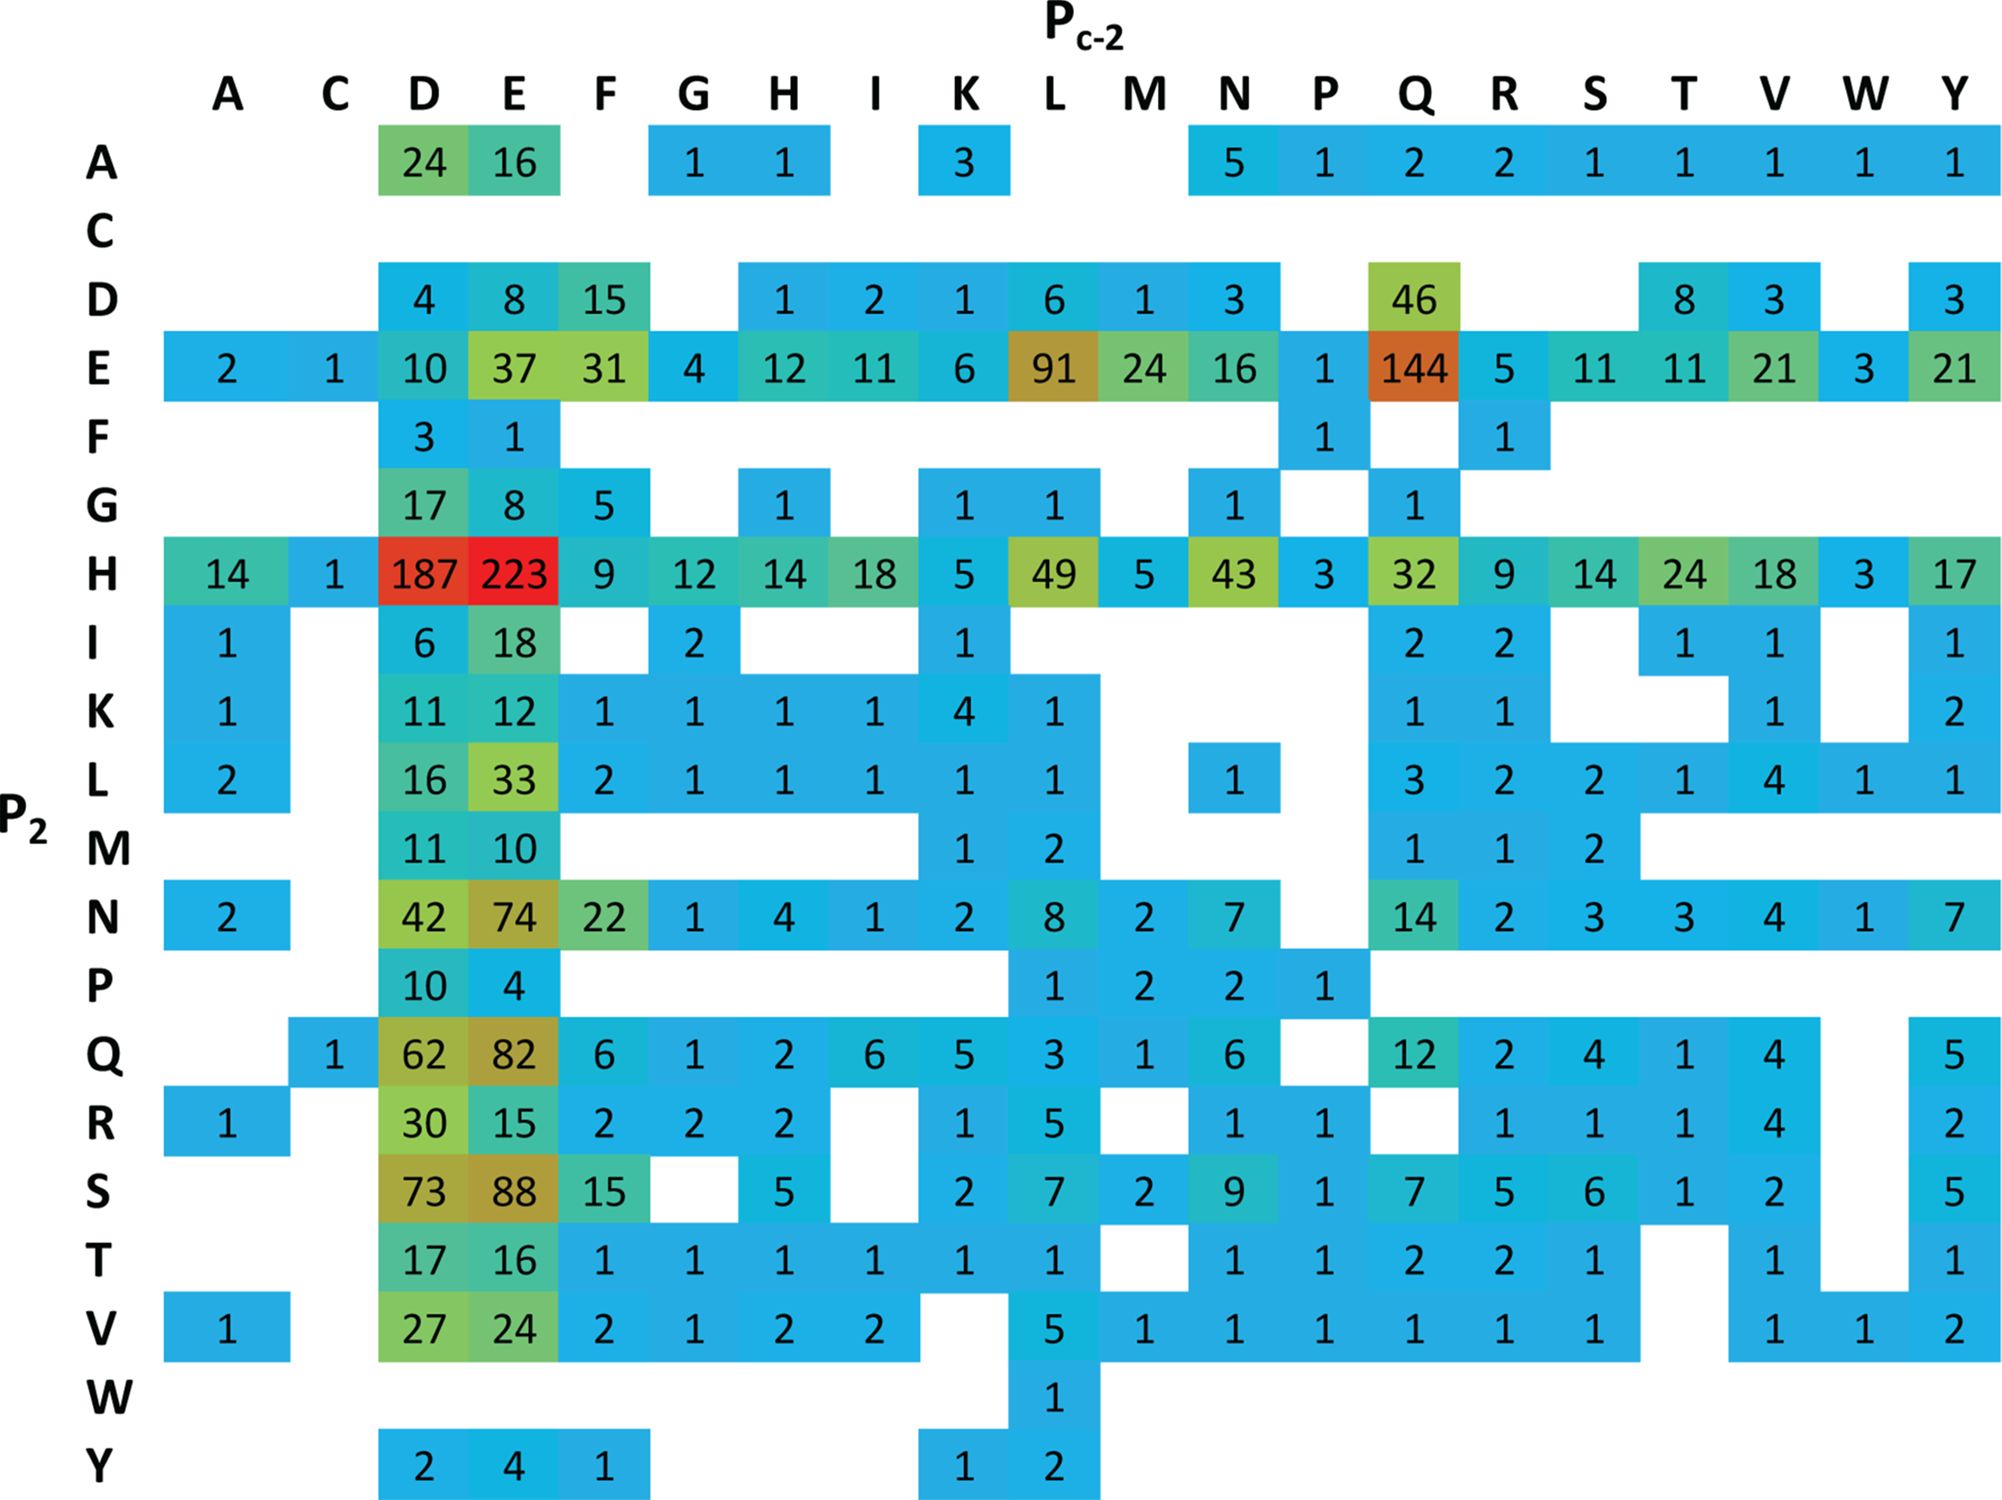
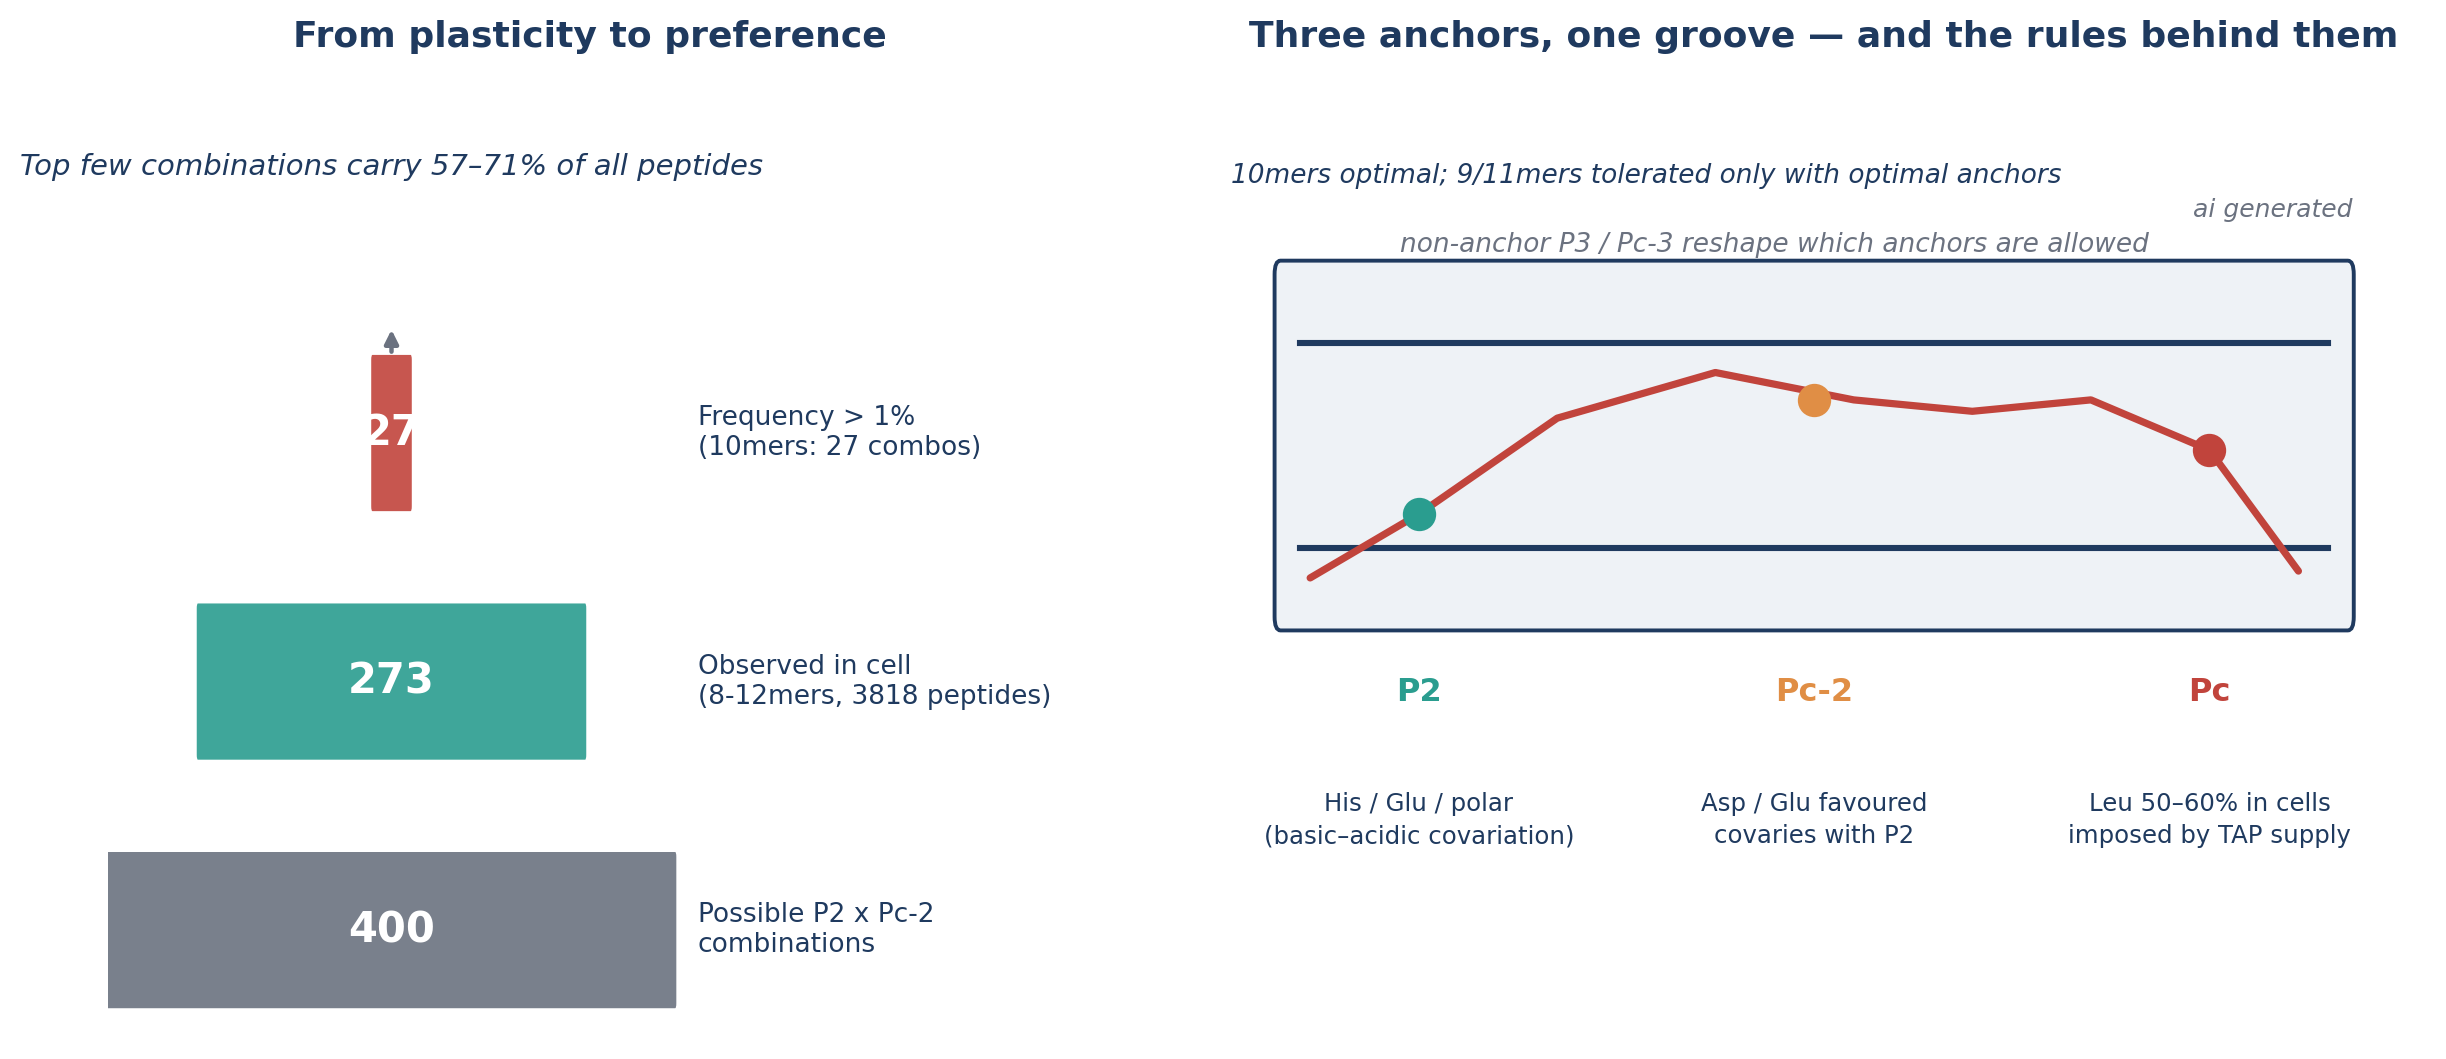
细胞端的结果给泛结合画出了数量级。AVOL-1 共检出 3818 条肽,从五肽延伸到五十肽,8–12mer 占 77.8%,其中 10mer 一枝独秀,1470 条、接近全部 8–12mer 的一半[1];Gibbs 聚类得到的 motif 复杂到难以一眼读出规则。400 种可能的 P2×Pc-2 组合里,9–11mer 实际观察到 238 种(8–12mer 为 273 种),网格几乎每一格都有肽落脚;但按频率看,超过 1% 的组合在 9、10、11mer 中分别只有 19、27、17 种,少数高频组合承载了全部肽段的 57–71%。宽库与偏好不是矛盾,而是同一现象的两面。
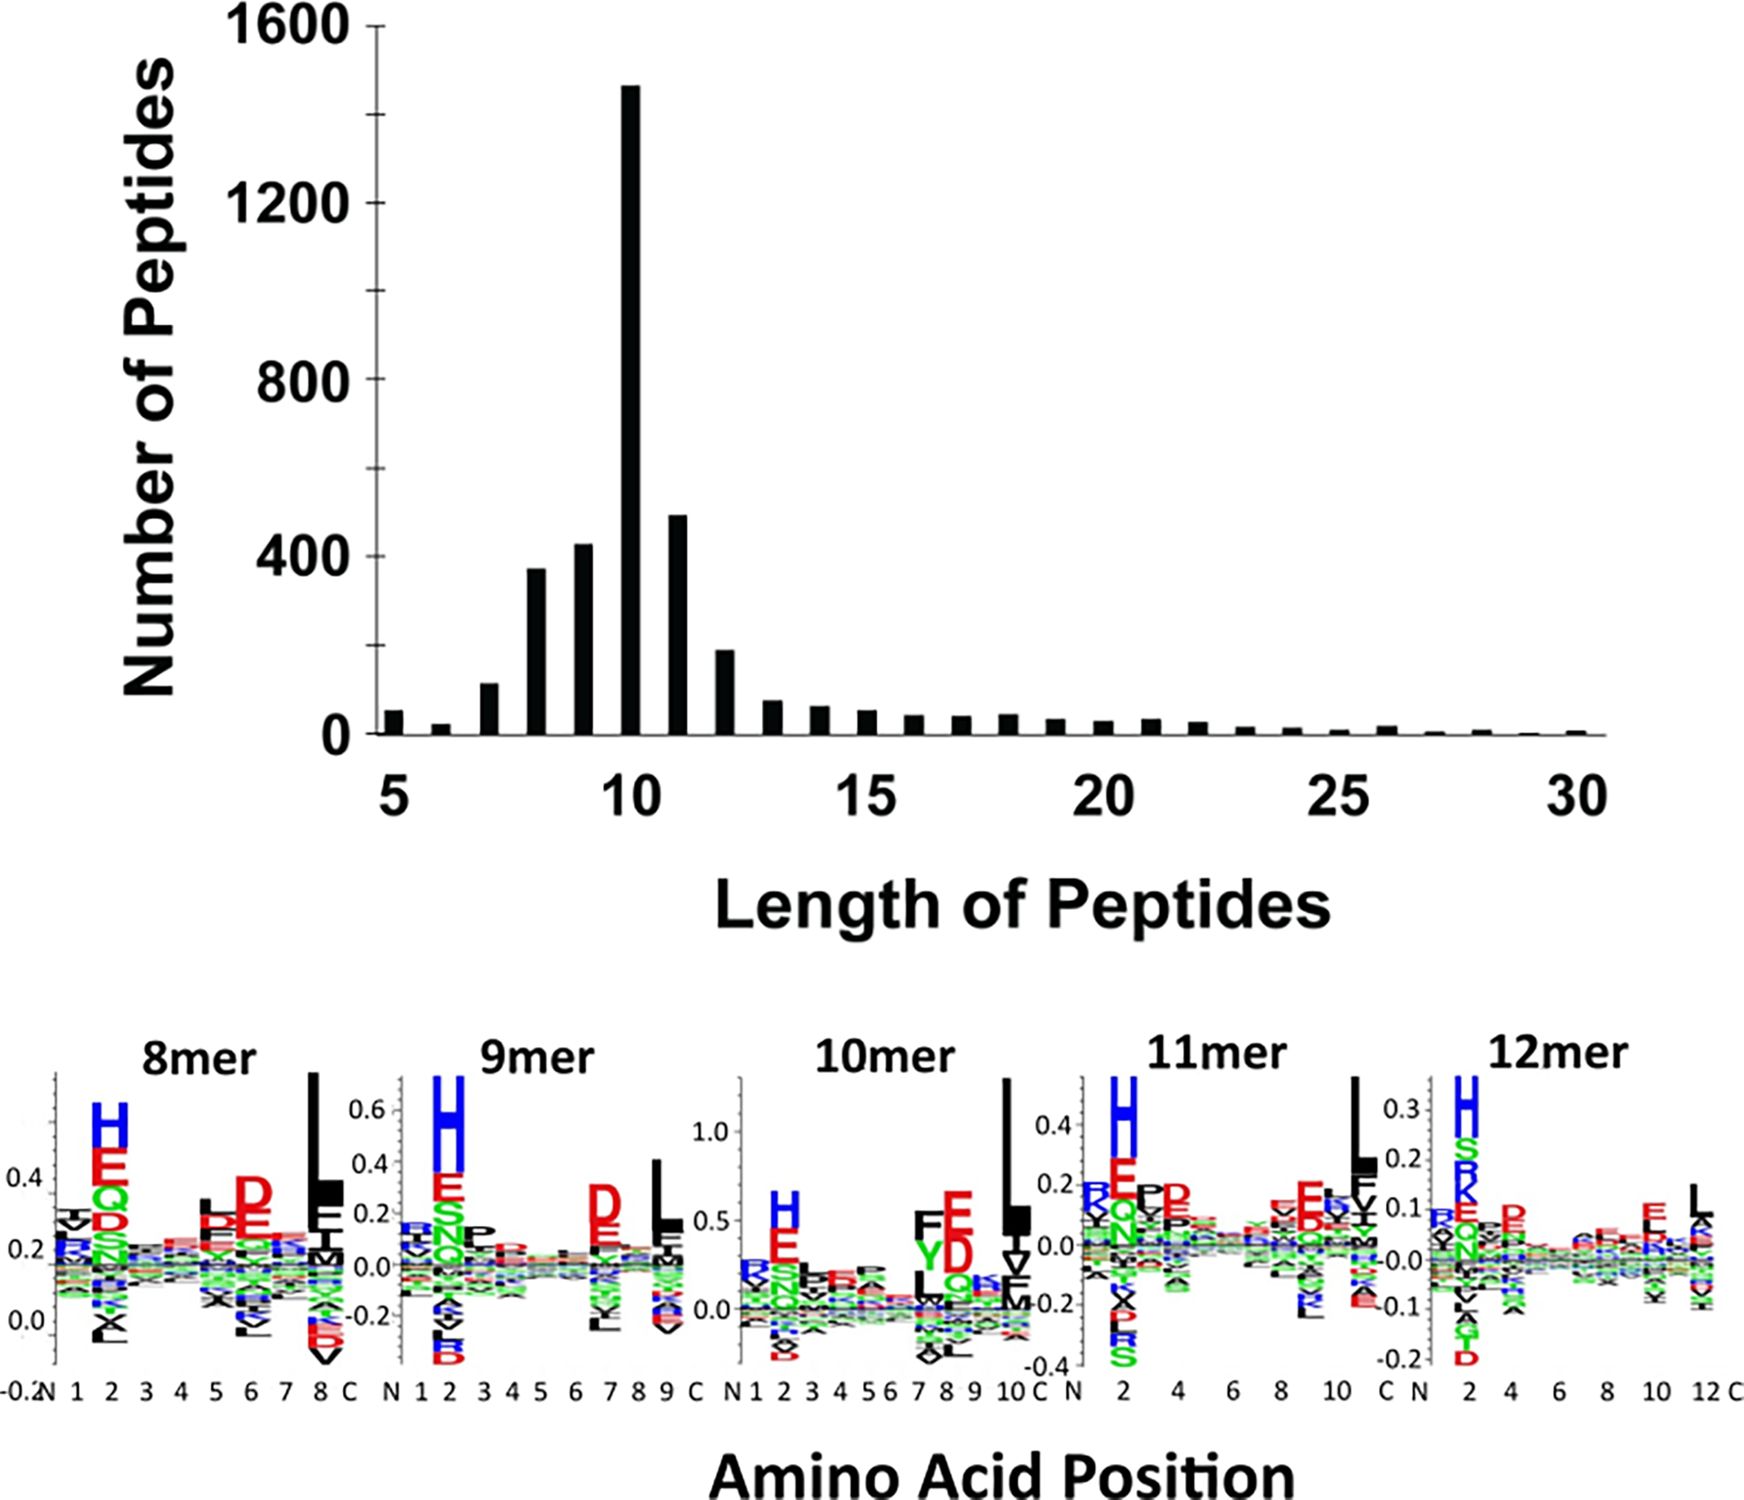
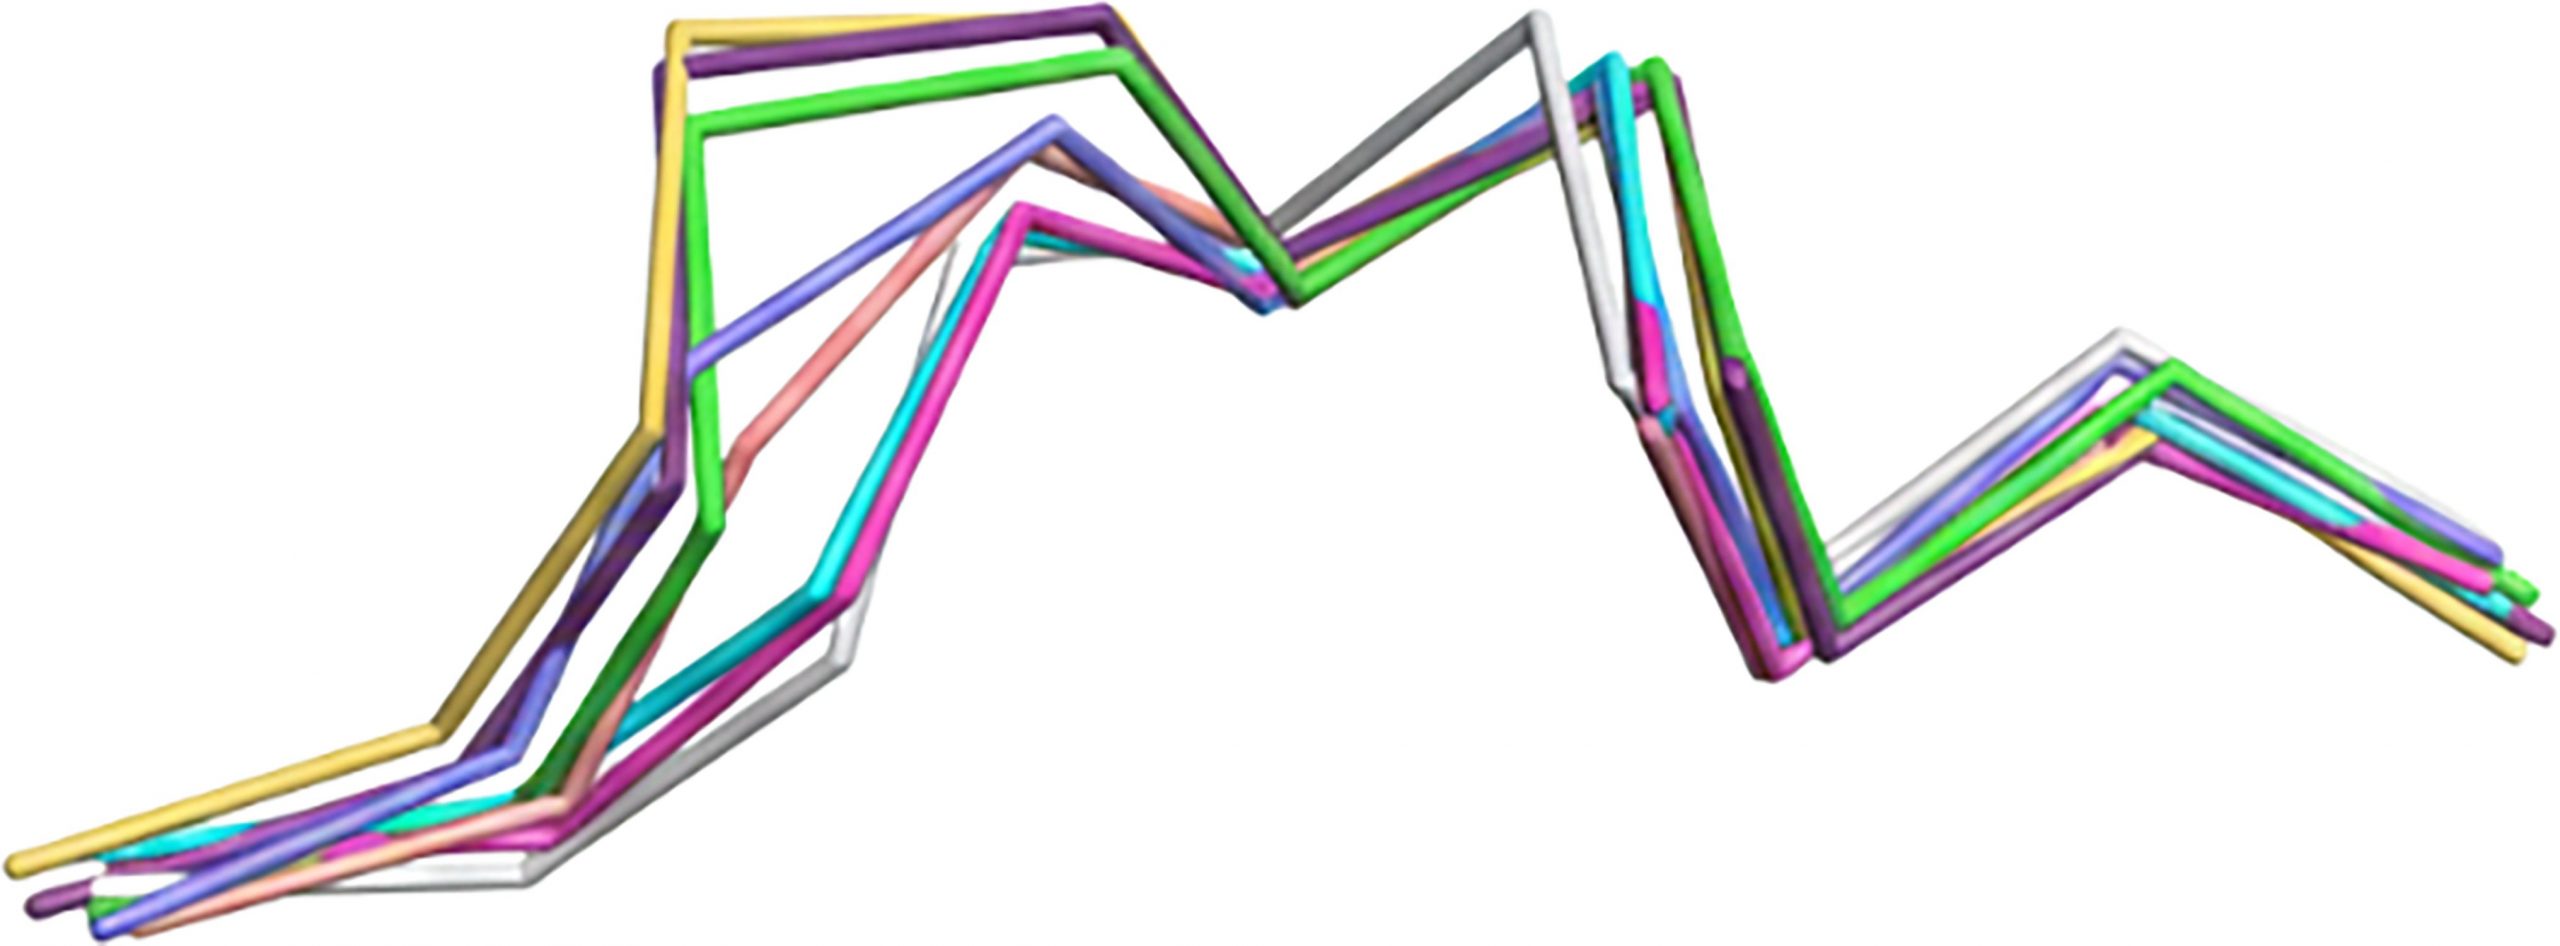
协变的结构逻辑来自晶体:His 在 P2 的肽只接受特定酸性残基落在 Pc-2,换成 Arg 则只剩下 Asp 可用,模型能解释每一次失败的复折叠[8]。更值得注意的是 Pc。体外装配里 Ile/Leu、Phe、Met、Val 都能坐进 F 袋,细胞里却50–60% 的肽在 Pc 位清一色是 Leu;作者把这份偏好归因于 B21 多态性 TAP 的转运特异性,也就是说,呈递的原料在进入内质网之前已经被筛过一遍[9]。非锚定位置的 P3 与 Pc-3 同样参与排序,P3 的高频 Pro 会改变 P2 的可选集合。八个结构的肽主链在 C 端七残基几乎重合,N 端则各奔东西,作者由此提出 C 端先落座、N 端再迁就的排序图景,与 TAP 对 C 端的偏好和 ERAP 的修剪逻辑一致[10]。
两条路线的差异可以在一张表里对齐。
| 位置或指标 | 体外复折叠与装配 | 细胞免疫肽组学(AVOL-1) |
|---|---|---|
| P2 | 骨架依赖,His 在 11mer 骨架上占绝对多数 | Glu 与 His 近乎均等,另有 Asn、Gln、Ser |
| Pc-2 | 组合数随骨架变化:10mer 骨架 32–55 种,11mer 骨架 16–24 种 | Asp 与 Glu 主导,酸性 P2 偏好 Gln |
| Pc | Ile/Leu、Phe、Met、Val 均可装配 | Leu 占 50–60%,其余氨基酸零星出现 |
| 组合总数 | 四个骨架共 159 种(LC-MS/MS) | 一次实验见 260 种(8–12mer 合计 273) |
| 性质 | 分子自身的物理容量 | 叠加 TAP 转运与细胞质控后的净结果 |
这套对比的局限作者自己列得很清楚:离子化效率跨数量级波动使峰高与离子流不能当作定量读数[11];MALDI-TOF 无法区分 I/L、Q/K 与残基归属,LC-MS/MS 敏感得多但只覆盖六个肽骨架;免疫肽组学只有一次生物学重复、单一细胞系,低表达的 BF1*21:01 始终是潜在的背景贡献;鸡 I 类分子还允许肽段从 C 端伸出槽外,Pc(连带 Pc-2、Pc-3)的指认本身就有不确定性[10]。最直接的证据来自 BF2*15:01:体外复折叠允许的锚定残基在细胞表面从未出现[3]。换言之,结合槽的容量不等于呈递组学的内容——从 TAP 转运、装载复合体的质控到 ERAP 修剪,每一道工序都在缩窄最终名单。
这些简化原则最终指向预测。作者在结尾处说得很克制:机器学习能给出答案,却不解释为什么[1];BF2*21:01 这批数据补的正是“为什么”一层。同类故事在鸡 MHC 里已有先例——抗性单倍型的显性 II 类分子只用一个前所未有的motif呈递极少数马立克氏病毒肽[12]。对做人类免疫肽组学的人,这篇论文的提醒比鸡本身重要:配体组不是结合预测的输出,而是从转运到装载全链条的产物,在把预测器跑分当终点之前,先弄清楚每一道工序往哪个方向筛。
参考文献
- Harrison M, Chappell PE, Halabi S, Danysz M, Mararo EM, Magiera L, Hermann C, Deery MJ, Lilley KS, Wallny HJ, Avila DW, Mwangi W, Nair V, Ternette N, Kaufman J. Simplifying principles underlying the highly complex peptide motif of the promiscuous chicken MHC class I molecule, BF2*21:01. eLife 2026;15:RP111098. DOI: 10.7554/eLife.111098
- Kaufman J, Wallny HJ. A “minimal essential Mhc” and an “unrecognized Mhc”: two extremes in selection for polymorphism. Immunological Reviews 1995;143:63–88. DOI: 10.1111/j.1600-065x.1995.tb00670.x
- Wallny HJ, Avila D, Hunt LG, Carlson J, Kaufman J. Peptide motifs of the single dominantly expressed class I molecule explain the striking MHC-determined response to Rous sarcoma virus in chickens. Proc Natl Acad Sci USA 2006;103:1434–1439. DOI: 10.1073/pnas.0507386103
- Chappell PE, Meziane OK, Harrison M, et al. Expression levels of MHC class I molecules are inversely correlated with promiscuity of peptide binding. eLife 2015;4:e05345. DOI: 10.7554/eLife.05345
- Rizvi SM, Salam N, Geng J, et al. Distinct assembly profiles of HLA-B molecules. Journal of Immunology 2014;192:4967–4976. DOI: 10.4049/jimmunol.1301670
- Bashirova AA, Viard M, Naranbhai V, et al. HLA tapasin independence: broader peptide repertoire and HIV control. Proc Natl Acad Sci USA 2020;117:28232–28238. DOI: 10.1073/pnas.2013554117
- Manczinger M, Boross G, Kemény L, et al. Pathogen diversity drives the evolution of generalist MHC-II alleles in human populations. PLoS Biology 2019;17:e3000131. DOI: 10.1371/journal.pbio.3000131
- Koch M, Camp S, Collen T, et al. Structures of an MHC class I molecule from B21 chickens illustrate promiscuous peptide binding. Immunity 2007;27:885–899. DOI: 10.1016/j.immuni.2007.11.007
- Tregaskes CA, Harrison M, Sowa AK, et al. Surface expression, peptide repertoire, and thermostability of chicken class I molecules correlate with peptide transporter specificity. Proc Natl Acad Sci USA 2016;113:692–697. DOI: 10.1073/pnas.1511859113
- Xiao J, Xiang W, Zhang Y, et al. An invariant arginine in common with MHC class II allows extension at the C-terminal end of peptides bound to chicken MHC class I. Journal of Immunology 2018;201:3084–3095. DOI: 10.4049/jimmunol.1800611
- Abdul-Khalek N, Picciani M, Shouman O, et al. To fly, or not to fly, that is the question: a deep learning model for peptide detectability prediction in mass spectrometry. Journal of Proteome Research 2025;24:2709–2726. DOI: 10.1021/acs.jproteome.4c00973
- Härtle S, Kaufman J. The dominantly expressed class II molecule from a resistant MHC haplotype presents only a few Marek’s disease virus peptides by using an unprecedented binding motif. PLoS Biology 2021;19:e3001057. DOI: 10.1371/journal.pbio.3001057
内容经AI校正和润色,审慎阅读