原文见笔者个人网站 www.liangxiao.pro。内容经AI校正和润色,可能存在不准确之处,仅供研究参考。
干扰素信号与 MHC-I 上调如何把一个“冷”肿瘤变成免疫可识别的靶子,过去三年里被一批线粒体论文从不同方向反复触碰。11 月 11 日 Nature 上线的这项工作把注意力从呼吸链移到了蛋白输入机器:哈佛医学院 Puigserver 与 Gygi 两个实验室合作,敲低内膜 TIM23 输入复合物的核心亚基 TIMM50,肿瘤在免疫健全小鼠里生长受阻,并与免疫检查点阻断协同[1]。免疫逃逸的诸多适应里,抗原呈递的压制排在最靠前的位置[2]。这条线的更早几站分别是:2023 年 Science 报道操纵呼吸链电子流可以增强肿瘤免疫原性[3],2025 年 Nature Cancer 报道复合物 I 亚基 NDUFS4/6 的选择性缺失让肿瘤变热[4],同年 Nature 报道外膜通道 VDAC2 的丢失引发肿瘤破坏与炎症[5]。靶点彼此不同,指向的却是同一个观察——线粒体的内部状态是肿瘤免疫原性的一个上游旋钮。
| 研究 | 扰动的线粒体环节 | 主张的免疫结局 |
|---|---|---|
| Mangalhara et al., Science 2023[3] | 呼吸链电子流 | 肿瘤免疫原性增强 |
| Liang et al., Nat Cancer 2025[4] | 复合物 I 亚基 NDUFS4/6 选择性缺失 | 肿瘤免疫原性增强 |
| Yuan et al., Nature 2025[5] | 外膜通道 VDAC2 丢失 | 肿瘤破坏与炎症 |
| Jackson et al., Nature 2026(本文)[1] | 内膜输入机器 TIMM50(TIM23 复合物) | 生长受阻 + 检查点阻断增敏 |
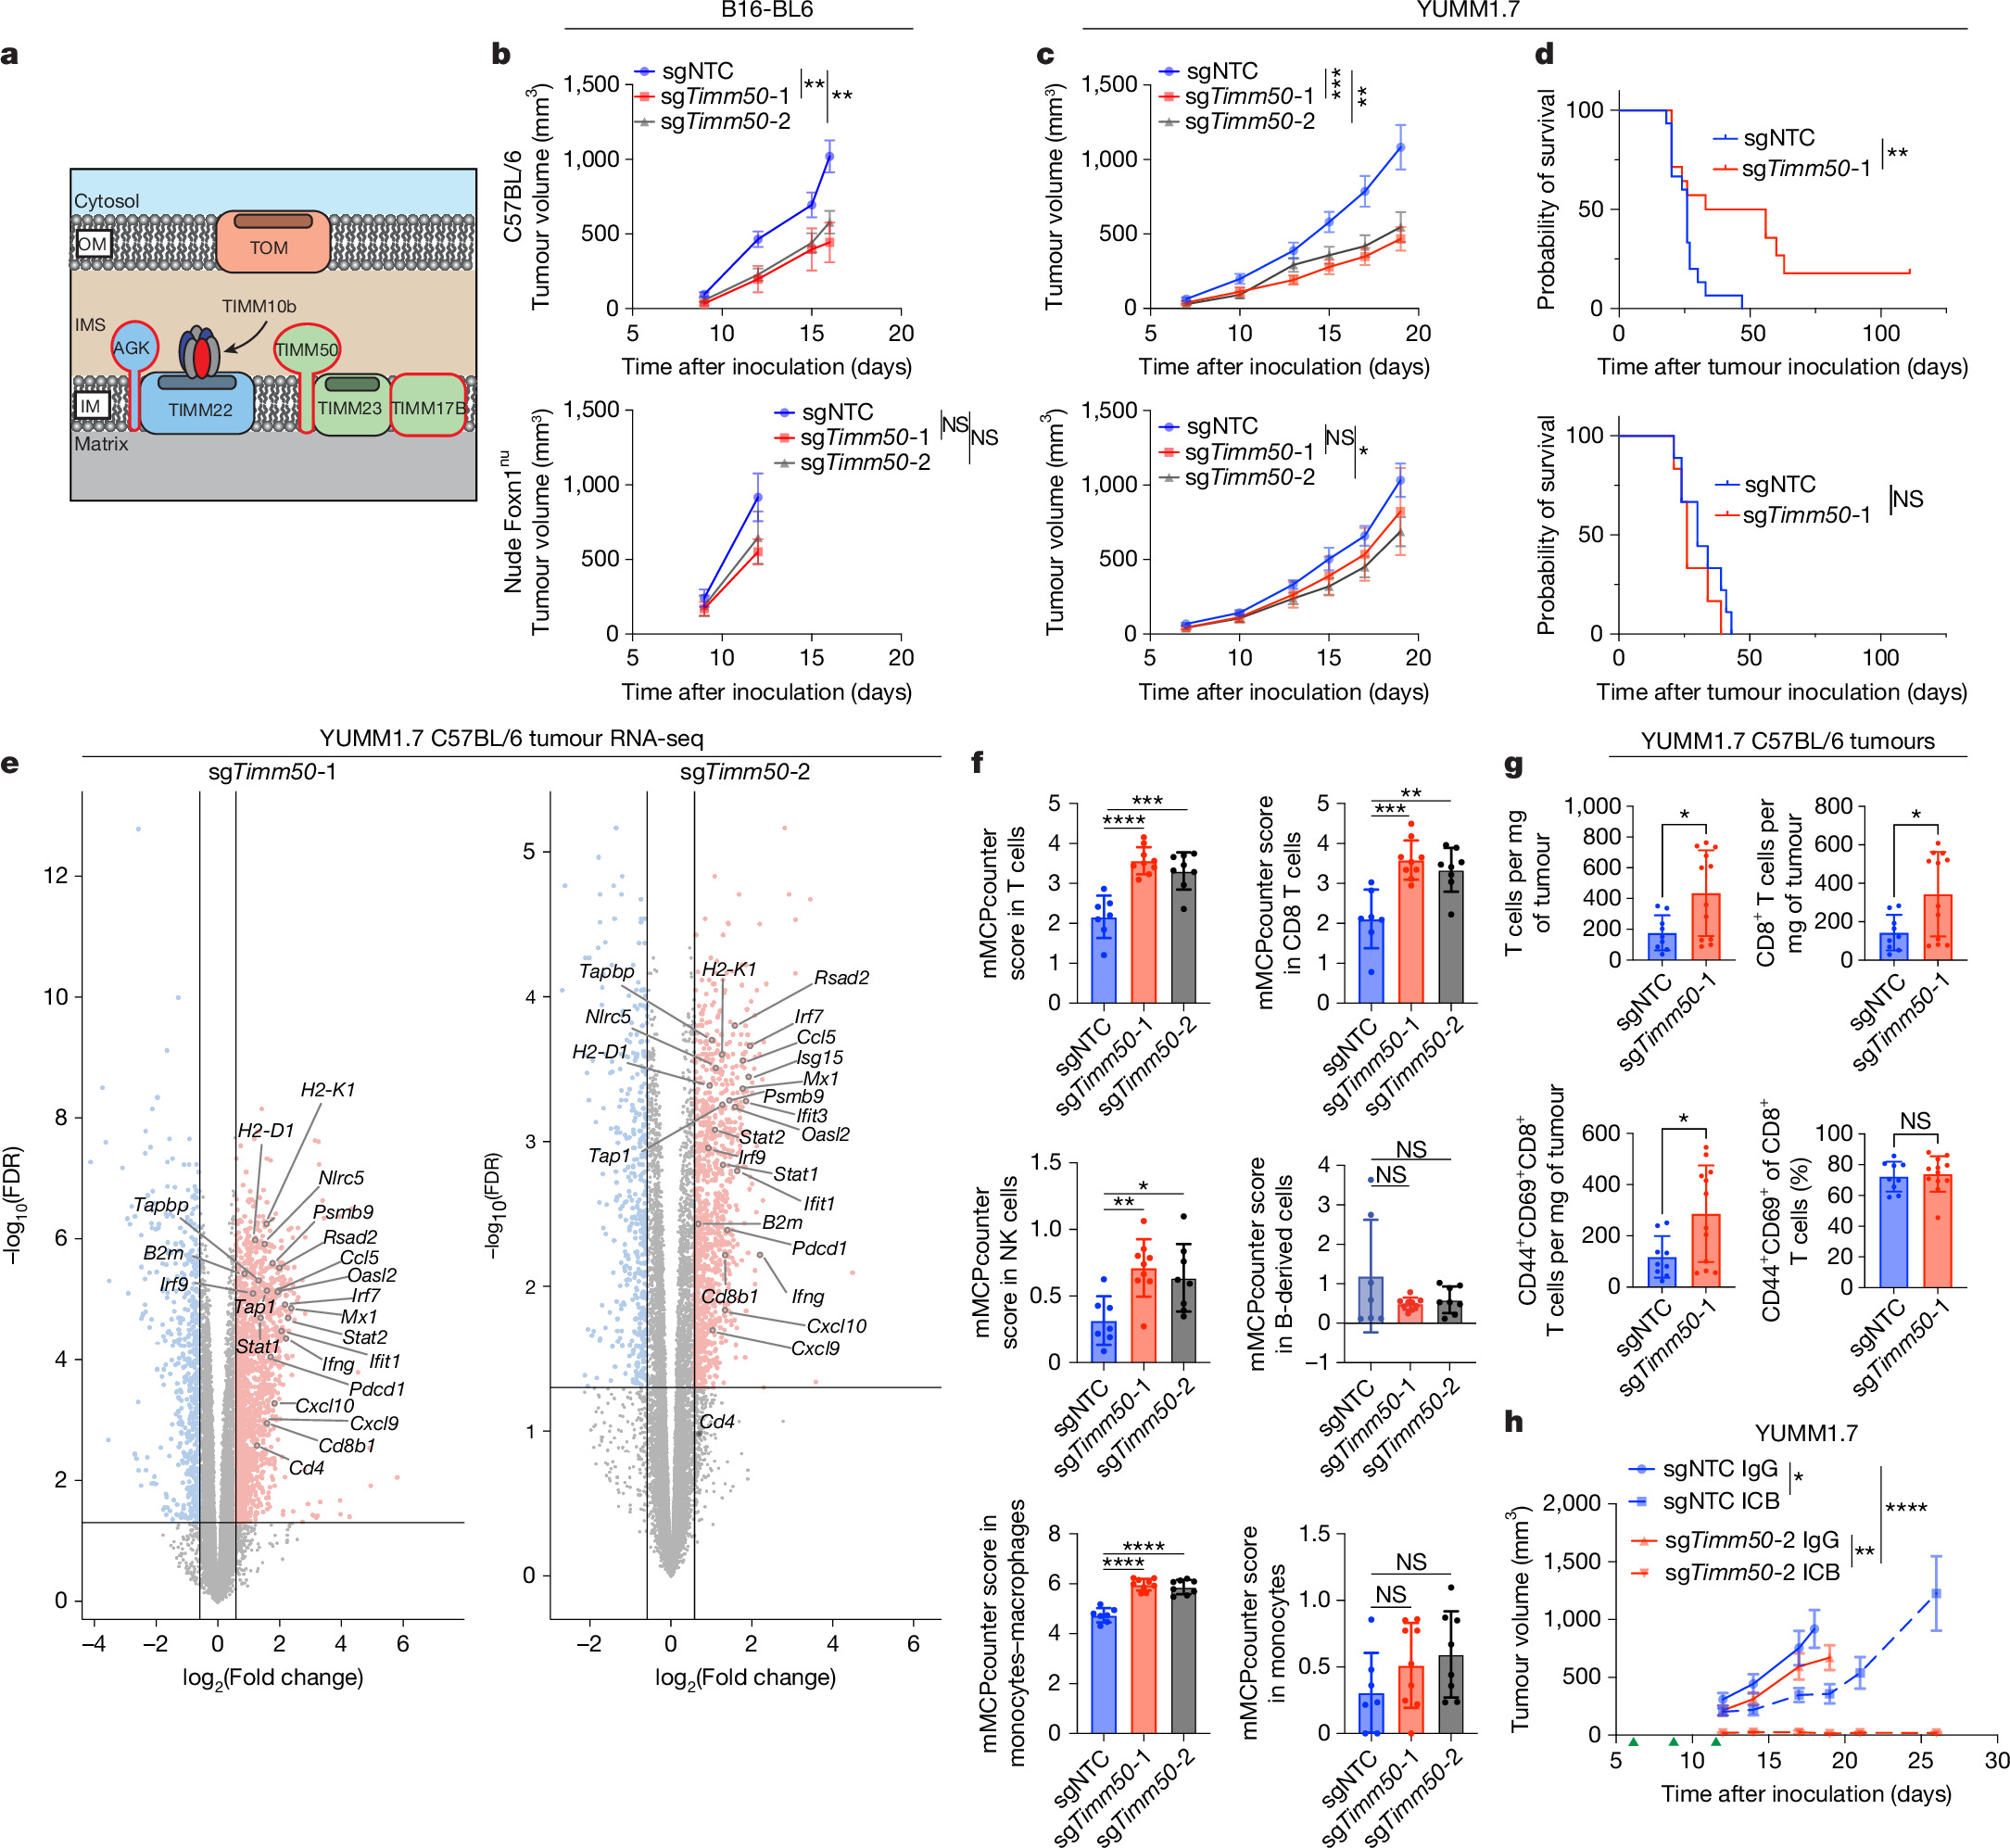
证据链的第一环是体内表型。在 B16-BL6 与 YUMM1.7 两个黑色素瘤模型里,两条独立的 sgRNA 敲低 Timm50 后,免疫健全 C57BL/6 小鼠的肿瘤体积只剩对照的一半上下,生存期显著延长;同样的细胞种到裸鼠身上,生长曲线几乎重合——优势完全依赖免疫系统。RNA-seq 的火山图上,下调的一侧集中在线粒体蛋白编码基因,上调的一侧是 H2-K1、H2-D1、Tap1、B2m、Stat1 与整个 I 型干扰素应答模块;mMCP-counter 反卷积给出 T 细胞与 NK 细胞浸润评分升高,流式计数确认 CD8 T 细胞渗入增加。CD8β 抗体剔除取消全部生长优势,而抗 PD-1/CTLA-4 类检查点阻断把 sgTimm50 肿瘤压到接近完全消退。这一段与近年同类论文的叙事结构几乎一致:扰动线粒体、肿瘤变热、CD8 依赖、ICB 增敏,真正的增量在机制层。
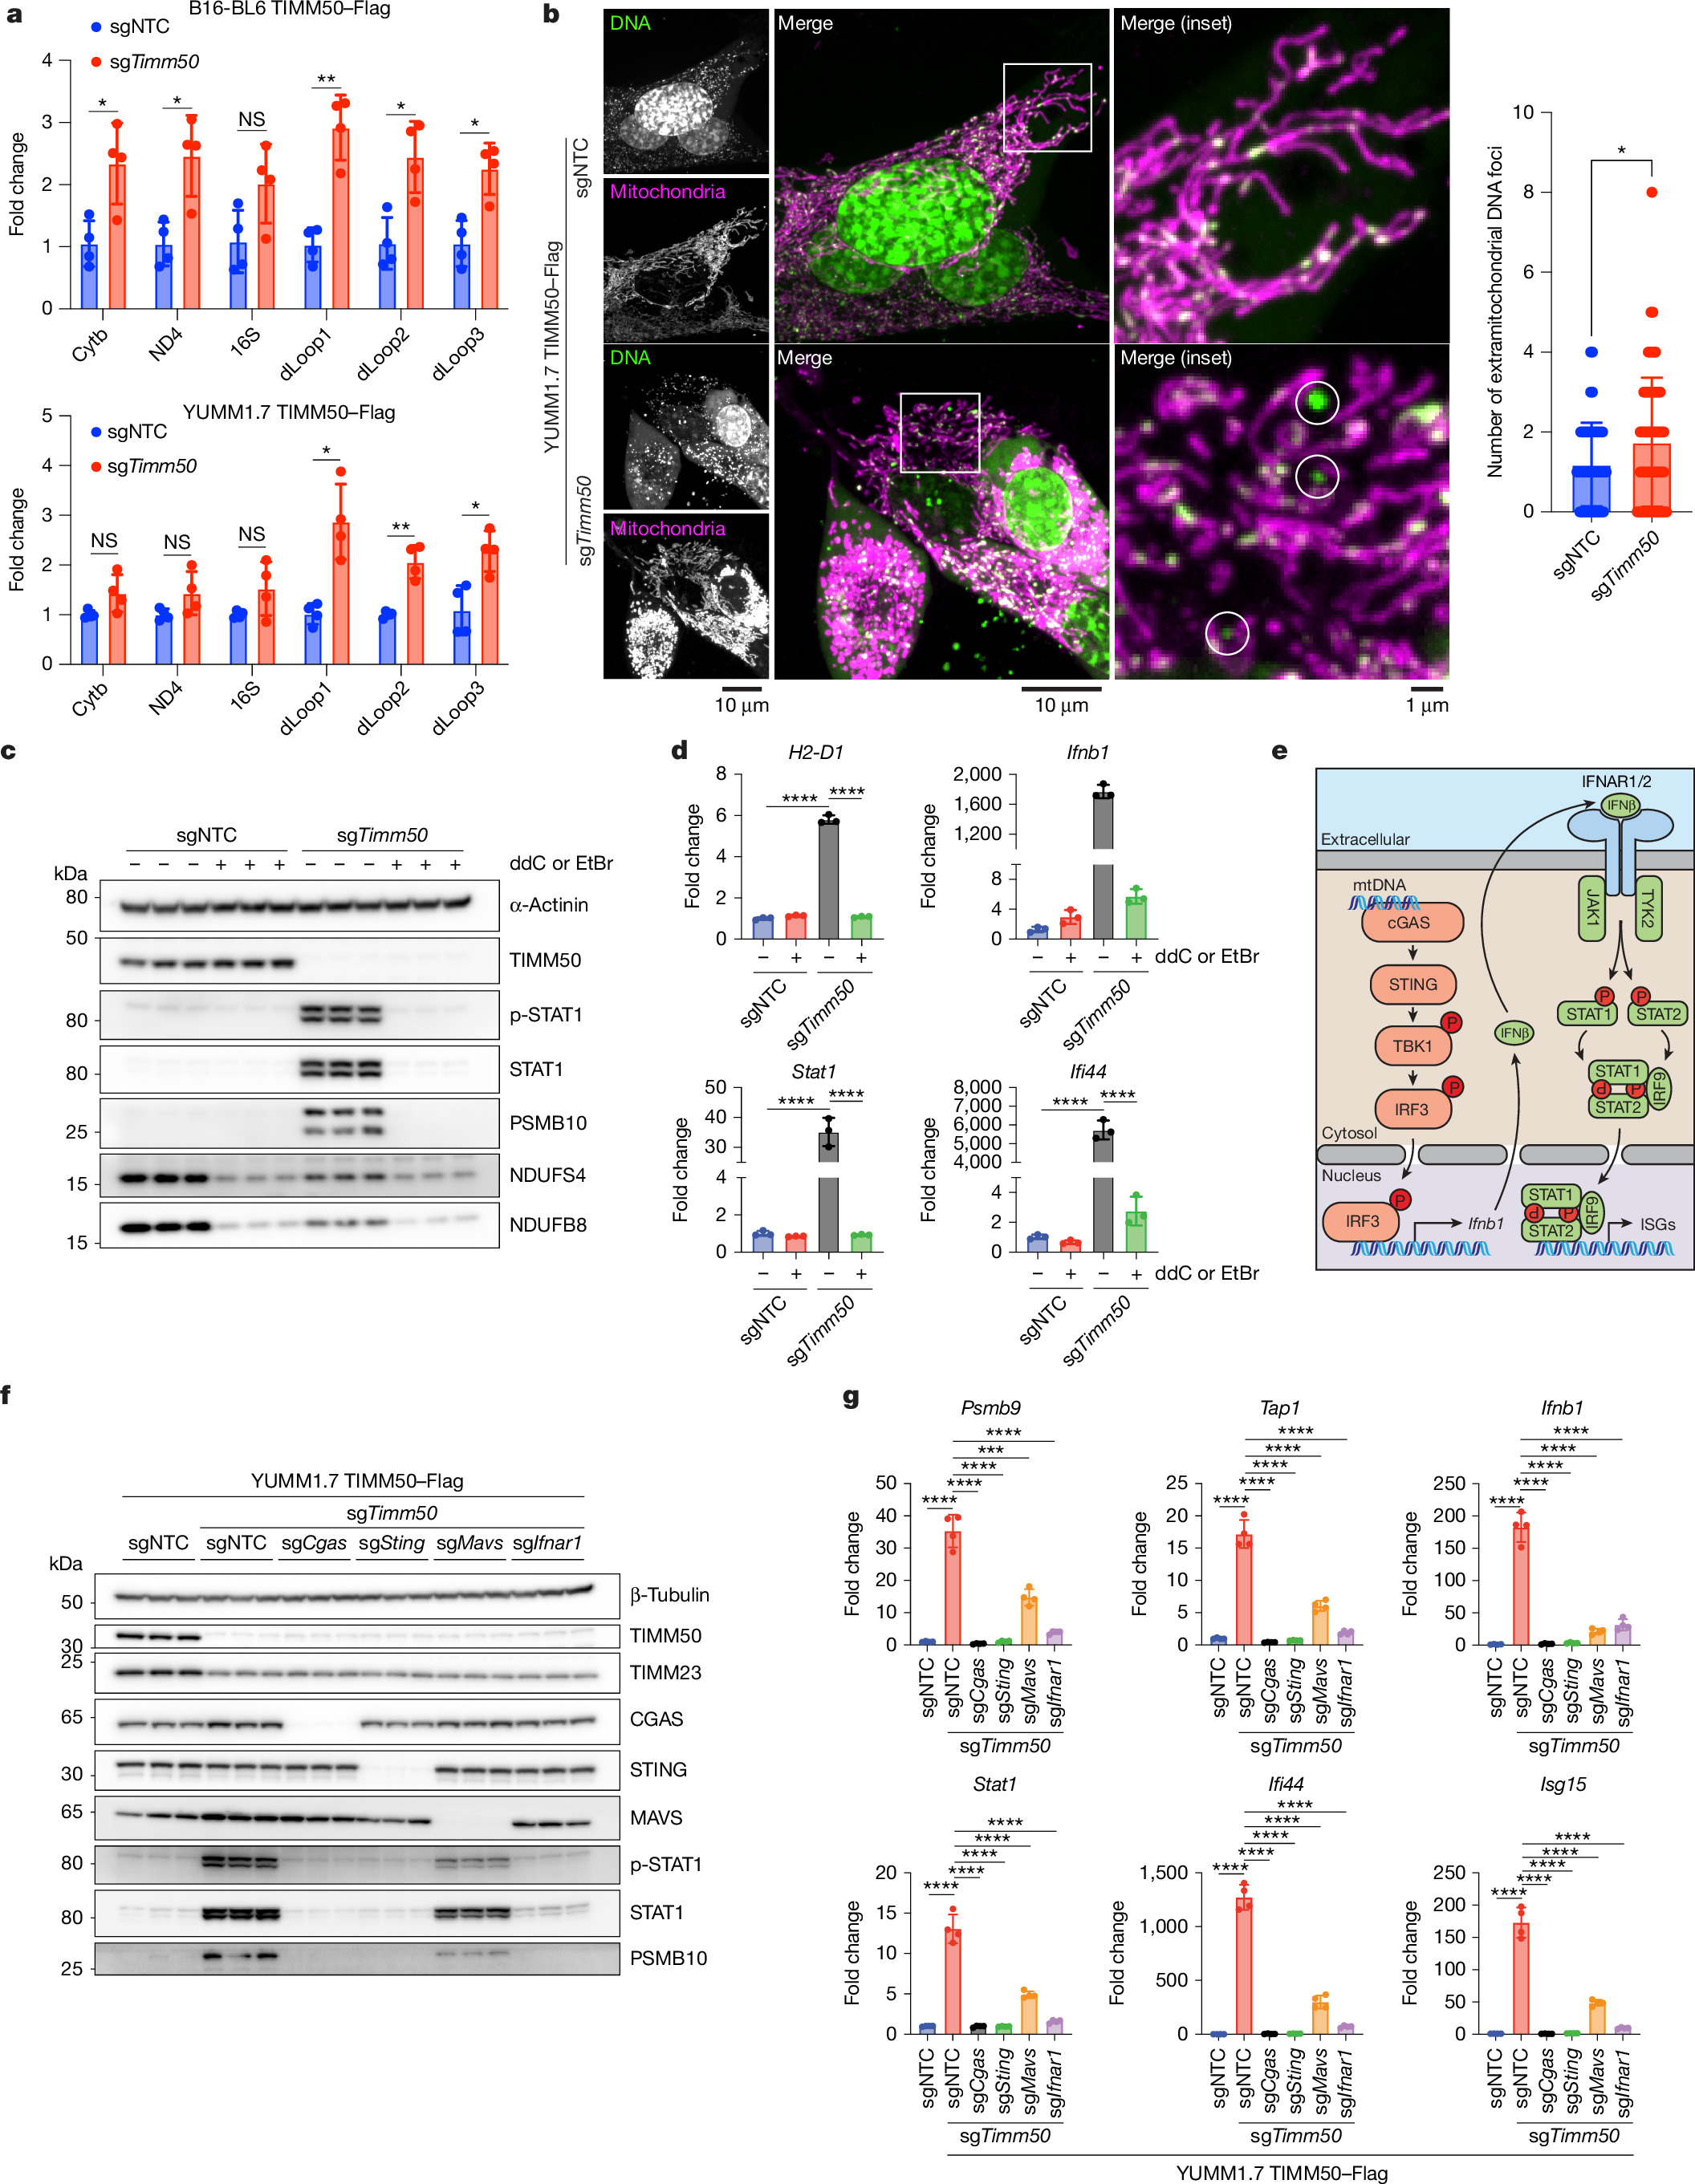
机制链的起点是 mtDNA 逃逸。敲低 Timm50 后,胞质组分中 mtDNA 特异性片段的富集明显上升,成像上可见线粒体边界外的 DNA 信号;用 ddC 或溴化乙锭把 mtDNA 耗竭,或过表达降解胞质 DNA 的 DNASE2A,整个干扰素应答随之消失。逐节点敲除实验把通路钉死在 cGAS–STING 一侧:sgCgas、sgSting、sgMavs、sgIfnar1 任何一个都让 IFNβ 与下游 ISG 的诱导归零,Stat1、Irf44 等应答基因同步回落。mtDNA 感知 cGAS–STING 并触发 I 型干扰素是先天免疫里被反复验证的骨架[6][7],这条链的新意在于上游:mtDNA 是怎么出来的。既有文献里 mPTP 与 VDAC 通道、凋亡相关的 BAK/BAX 大孔、焦亡相关的 gasdermin 孔都曾充当出口[8],本文用 VDAC 抑制剂 VBIT-4、环孢素 A 等干预的阴性结果,加上 TREX1 敲除的放大效应,把出口指向了一条囊泡路线。
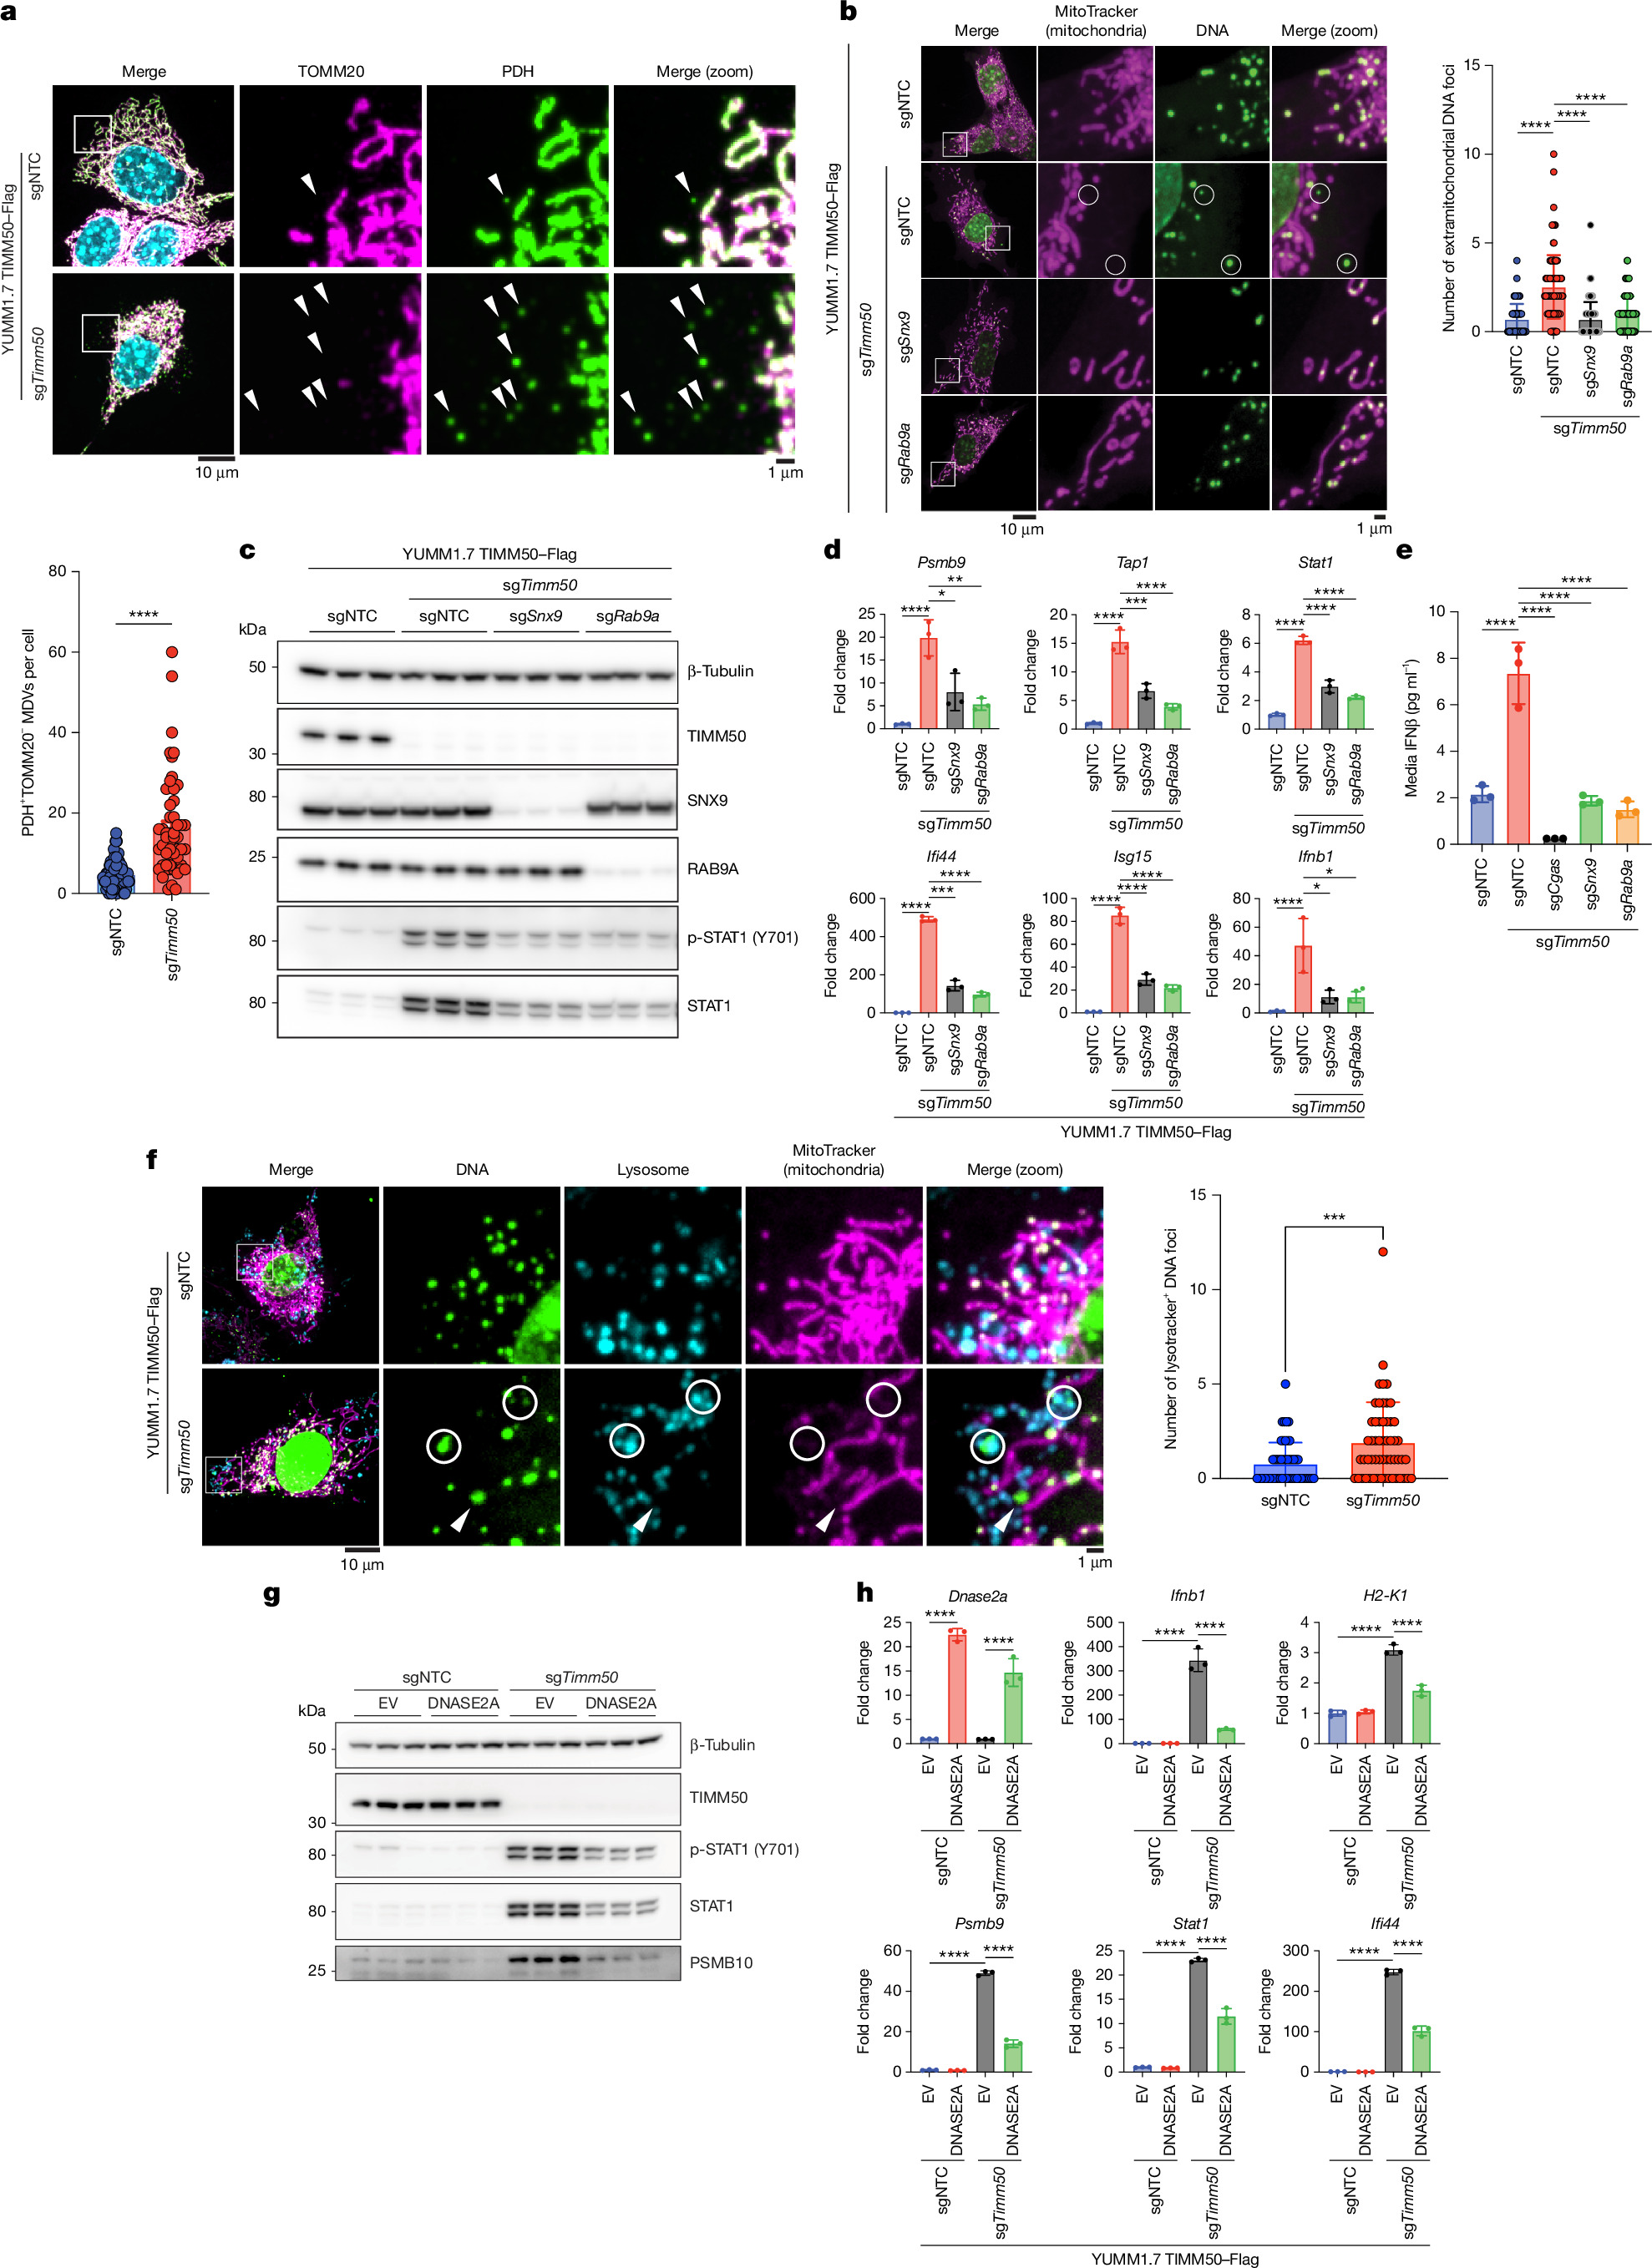
这条路线的载体是线粒体衍生囊泡(MDV)。光镜下可见 PDH 与 TOM20 双阳性的囊泡结构在 Timm50 缺失细胞中显著增多,部分进入溶酶体区室;敲低参与 MDV 生成与运输的 SNX9 与 RAB9A,囊泡数量、胞质 mtDNA 与下游干扰素信号同时回落,DNASE2A 过表达则能独立压制表型。MDV 作为线粒体货物的囊泡化出口在细胞生物学里已有多年积累[9],把它接到肿瘤免疫原性上是一次跨越:此前线粒体来源的 DNA 释放多半走通道或孔道,囊泡递送提供了一条既不依赖凋亡又不依赖孔道成孔的旁路。作者的解释是输入缺陷同时破坏了蛋白稳态与膜结构,膜动力学失稳催生囊泡,mtDNA 随之出逃——这是一个把“输入机坏了”与“DNA 出来了”焊起来的机制假说。
表型的分子刻画由蛋白质组学与代谢组学承担,这也是 Puigserver 与 Gygi 两个实验室合作的自然分工。数据集分四类——全细胞、线粒体、胞质与去垢剂溶解度分级,TMT 多重标记加 SPS-MS3 定量,配合 [U-13C6]-葡萄糖标记的代谢通量,原始数据在 PRIDE(PXD069846)。图像给出的图景是:输入缺陷不是单点损伤,而是蛋白稳态、膜结构、代谢与应激应答的多重缺陷同时塌方,免疫表型是这个汇聚的下游输出。线粒体蛋白输入机器本身在 2025 年的综述里被概括为一条分工严密的运输网络[10],TIMM50 作为 TIM23 复合物的核心组分承担了大部分基质蛋白的转运——敲低它等于同时切断膜电位依赖的输入流与蛋白稳态的维持,多重缺陷的塌方并不意外,意外的是免疫系统的读取方式如此专一:四类数据集里真正被 CD8 识别的下游,只有 IFNβ 驱动的 MHC-I 上调这一条。
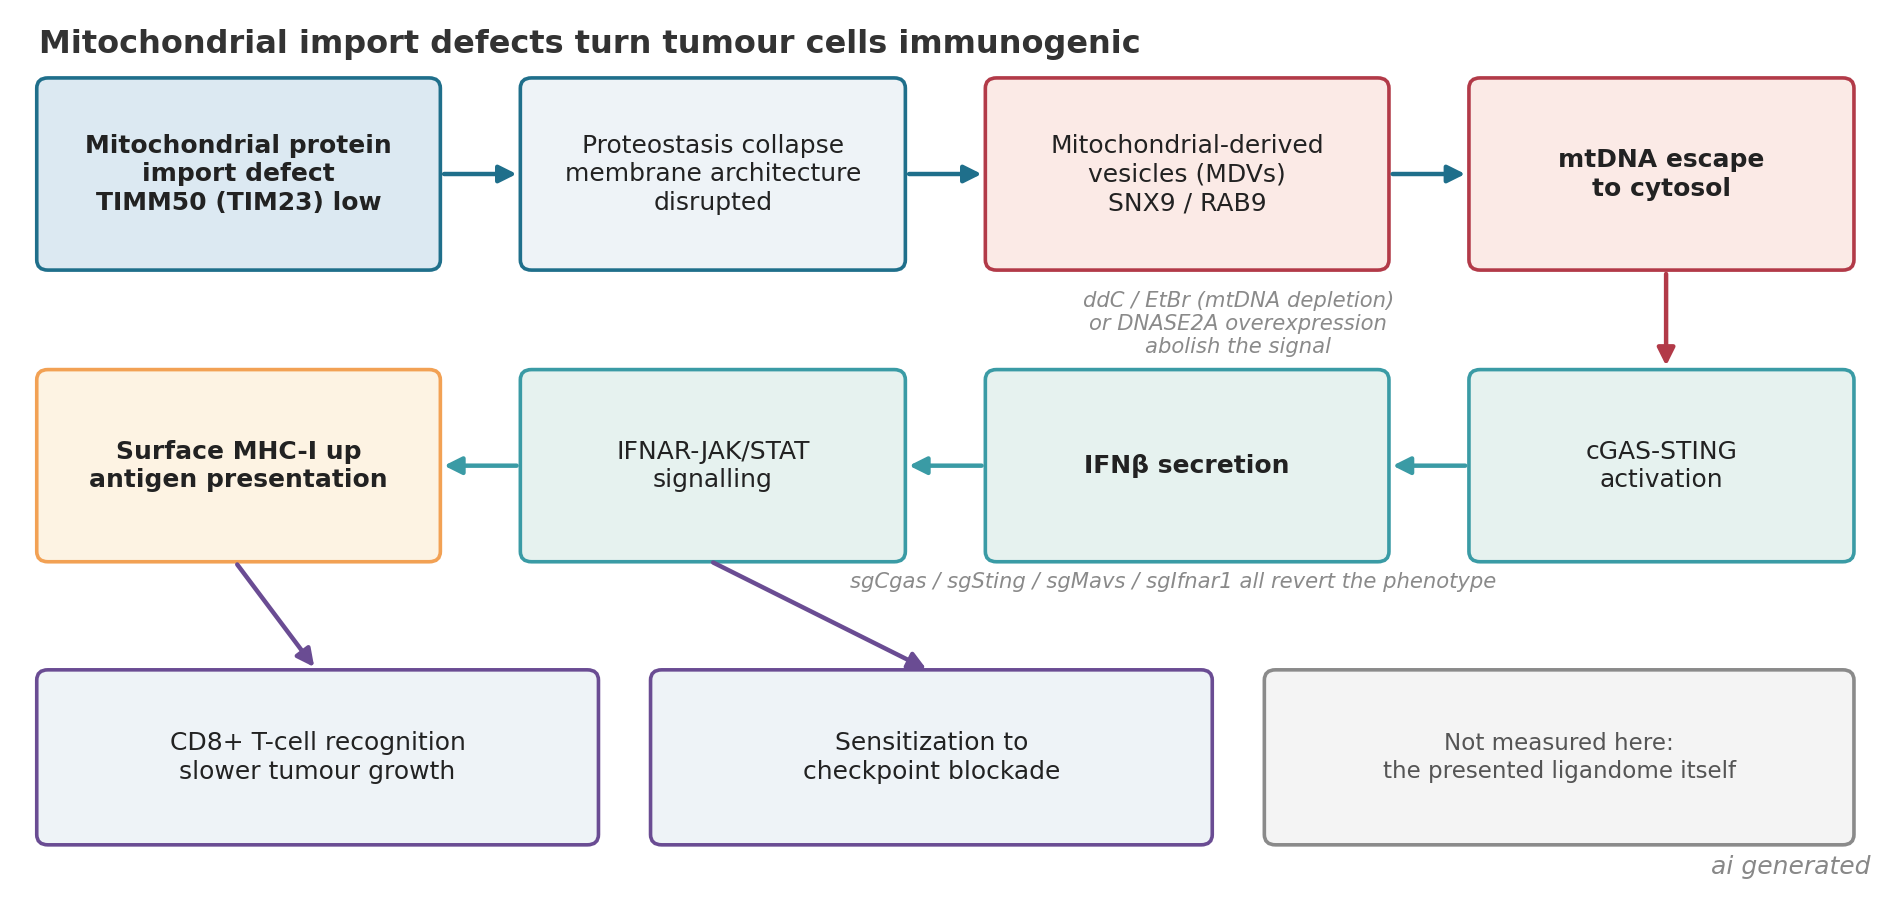
把这条链的薄弱环节摊开看,至少有三处。第一,机制闭环全部建立在细胞系与同基因小鼠模型上,B16-BL6、YUMM1.7、EO771、CT26 四个细胞系覆盖面不窄,但没有一条人类肿瘤数据,也没有任何体内给药手段——TIMM50 与整个输入机器是细胞必需组件,抑制它不是可成药的方向,这条路线的现实意义在于鉴定出 MDV–IFN 轴这个可干预的中游,而不是输入机器本身。第二,MDV 介导 mtDNA 逃逸的证据几乎全部依赖 SNX9/RAB9 敲低的抑制性结果,囊泡内容物的直接分离与测序仍属推断,通道与孔道路线被排除的完整性也只有有限几个药理学对照支撑。第三,也是对这条路线最要害的一点:论文测的是 MHC-I 的丰度与干扰素状态,呈递出来的配体组没有任何刻画——表位是变宽了还是换成了新面孔,CD8 究竟识别什么,全部留白。
这第三处缺口并不只属于这篇论文。线粒体与抗原呈递的交汇在此前已有先例:PINK1/Parkin 缺陷会解除对线粒体抗原呈递的抑制,故事发生在帕金森病[11];肿瘤一侧的几篇线粒体论文同样止步于表面 MHC-I 与干扰素读出。对一条以“让肿瘤被看见”为卖点的路线,被看见的是什么始终是未经检验的默认值。把 Timm50 缺失细胞与对照细胞的 HLA 配体组并排比较,观察表位宽度、来源蛋白与克隆型的变化,是一个标准免疫肽组学实验就能回答的问题,也是这项工作通向肿瘤免疫识别研究主流叙事的最短一座桥。
串起这四篇工作看,线粒体正在从能量工厂变成免疫原性的上游旋钮,电子流、呼吸链亚基、外膜通道、输入机器,每个环节的扰动都通向同一个输出。对临床而言这还不是药,但冷肿瘤的“热化”从此有了一条可测量的轴;对研究者而言,轴的末端——呈递的配体组——还空着。
- Jackson TD, Palozzi JM, McGann CD, et al. Mitochondrial protein import defects enhance tumour immunogenicity. Nature (2026). https://doi.org/10.1038/s41586-026-11249-1
- Galassi C, Chan TA, Vitale I, Galluzzi L. The hallmarks of cancer immune evasion. Cancer Cell 42, 1825-1863 (2024). https://doi.org/10.1016/j.ccell.2024.09.010
- Mangalhara KC, et al. Manipulating mitochondrial electron flow enhances tumor immunogenicity. Science 381, 1316-1323 (2023). https://doi.org/10.1126/science.abq1053
- Liang J, et al. Selective deficiency of mitochondrial respiratory complex I subunits Ndufs4/6 causes tumor immunogenicity. Nat Cancer 6, 323-337 (2025). https://doi.org/10.1038/s43018-024-00895-x
- Yuan S, et al. VDAC2 loss elicits tumour destruction and inflammation for cancer therapy. Nature 640, 1062-1071 (2025). https://doi.org/10.1038/s41586-025-08732-6
- West AP, et al. Mitochondrial DNA stress primes the antiviral innate immune response. Nature 520, 553-557 (2015). https://doi.org/10.1038/nature14156
- Hopfner KP, Hornung V. Molecular mechanisms and cellular functions of cGAS-STING signalling. Nat Rev Mol Cell Biol 21, 501-521 (2020). https://doi.org/10.1038/s41580-020-0244-x
- Zecchini V, et al. Fumarate induces vesicular release of mtDNA to drive innate immunity. Nature 615, 499-506 (2023). https://doi.org/10.1038/s41586-023-05770-w
- König T, McBride HM. Mitochondrial-derived vesicles in metabolism, disease, and aging. Cell Metab 36, 21-35 (2024). https://doi.org/10.1016/j.cmet.2023.11.014
- Endo T, Wiedemann N. Molecular machineries and pathways of mitochondrial protein transport. Nat Rev Mol Cell Biol 26, 848-867 (2025). https://doi.org/10.1038/s41580-025-00865-w
- Matheoud D, et al. Parkinson’s disease-related proteins PINK1 and Parkin repress mitochondrial antigen presentation. Cell 166, 314-327 (2016). https://doi.org/10.1016/j.cell.2016.05.039
内容经AI校正和润色,审慎阅读