原文见笔者个人网站 www.liangxiao.pro。内容经AI校正和润色,可能存在不准确之处,仅供研究参考。
邓迪大学与牛津大学免疫肿瘤中心的团队在十一月初的 Cell Reports 上重新丈量了 HLA-E 的配体组[1]。此前二十多年,这个多态性极低的非经典 MHC-I 分子在教科书里几乎只有一张面孔:它驻留经典 HLA-I 的信号肽前导序列,1998 年两个小组同时发现它结合 NK 受体 CD94/NKG2A 与 CD94/NKG2C[2][3],由此确立了“经典 MHC-I 加工监视器”的身份——细胞表面的 HLA-E 装着 HLA-A/B/C 的前导肽,一旦经典分子的加工出问题,HLA-E 便从表面消失,NK 细胞失去抑制信号。除了 VL9 这样的一族前导肽,HLA-E 还能装什么,鲜有人系统追问。临床端则给了另一重想象:正因多态性远低于 HLA-A/B/C,针对 NKG2A 的抗体 monalizumab 已进入肿瘤临床试验[4],现货型治疗对 HLA-E 配体组的需求真实存在,可这个配体组到底有多大,长期缺一份像样的测量。
测量的瓶颈首先在预测。HLA-E 配体在 pan-HLA 免疫肽组数据里被海量非 HLA-E 肽淹没,通用预测器为数百个经典等位基因训练,分给 HLA-E 的注意力本就稀薄,候选命中率低。作者把 IEDB 中 659 条已注释的 HLA-E 结合肽筛成 284 条高置信种子,再加入自家 nDSF 实验得到的 binder 与 non-binder 数据——这部分数据在公共数据库里不存在——训练出由 20 个 elastic net 逻辑回归组成的集成模型 eHLAstic,只针对 9-mer。用 HLA-E 特异抗体 3D12 富集的 Jurkat 数据做盲测,eHLAstic 预测的 13 条里 10 条经 nDSF 验证结合,精度 0.77;NetMHCpan 4.1b 的 46 条候选只验出 12 条(0.26)[5],MHCflurry 2.0 的 21 条只验出 4 条(0.19)[6]。在 pan-HLA(W6/32)数据集里随机抽验 13 条,8 条通过。同样的实验预算下,可用配体的产出相差近三倍,这是把 HLA-E 从通用模型的边角料里捞出来的关键一步。
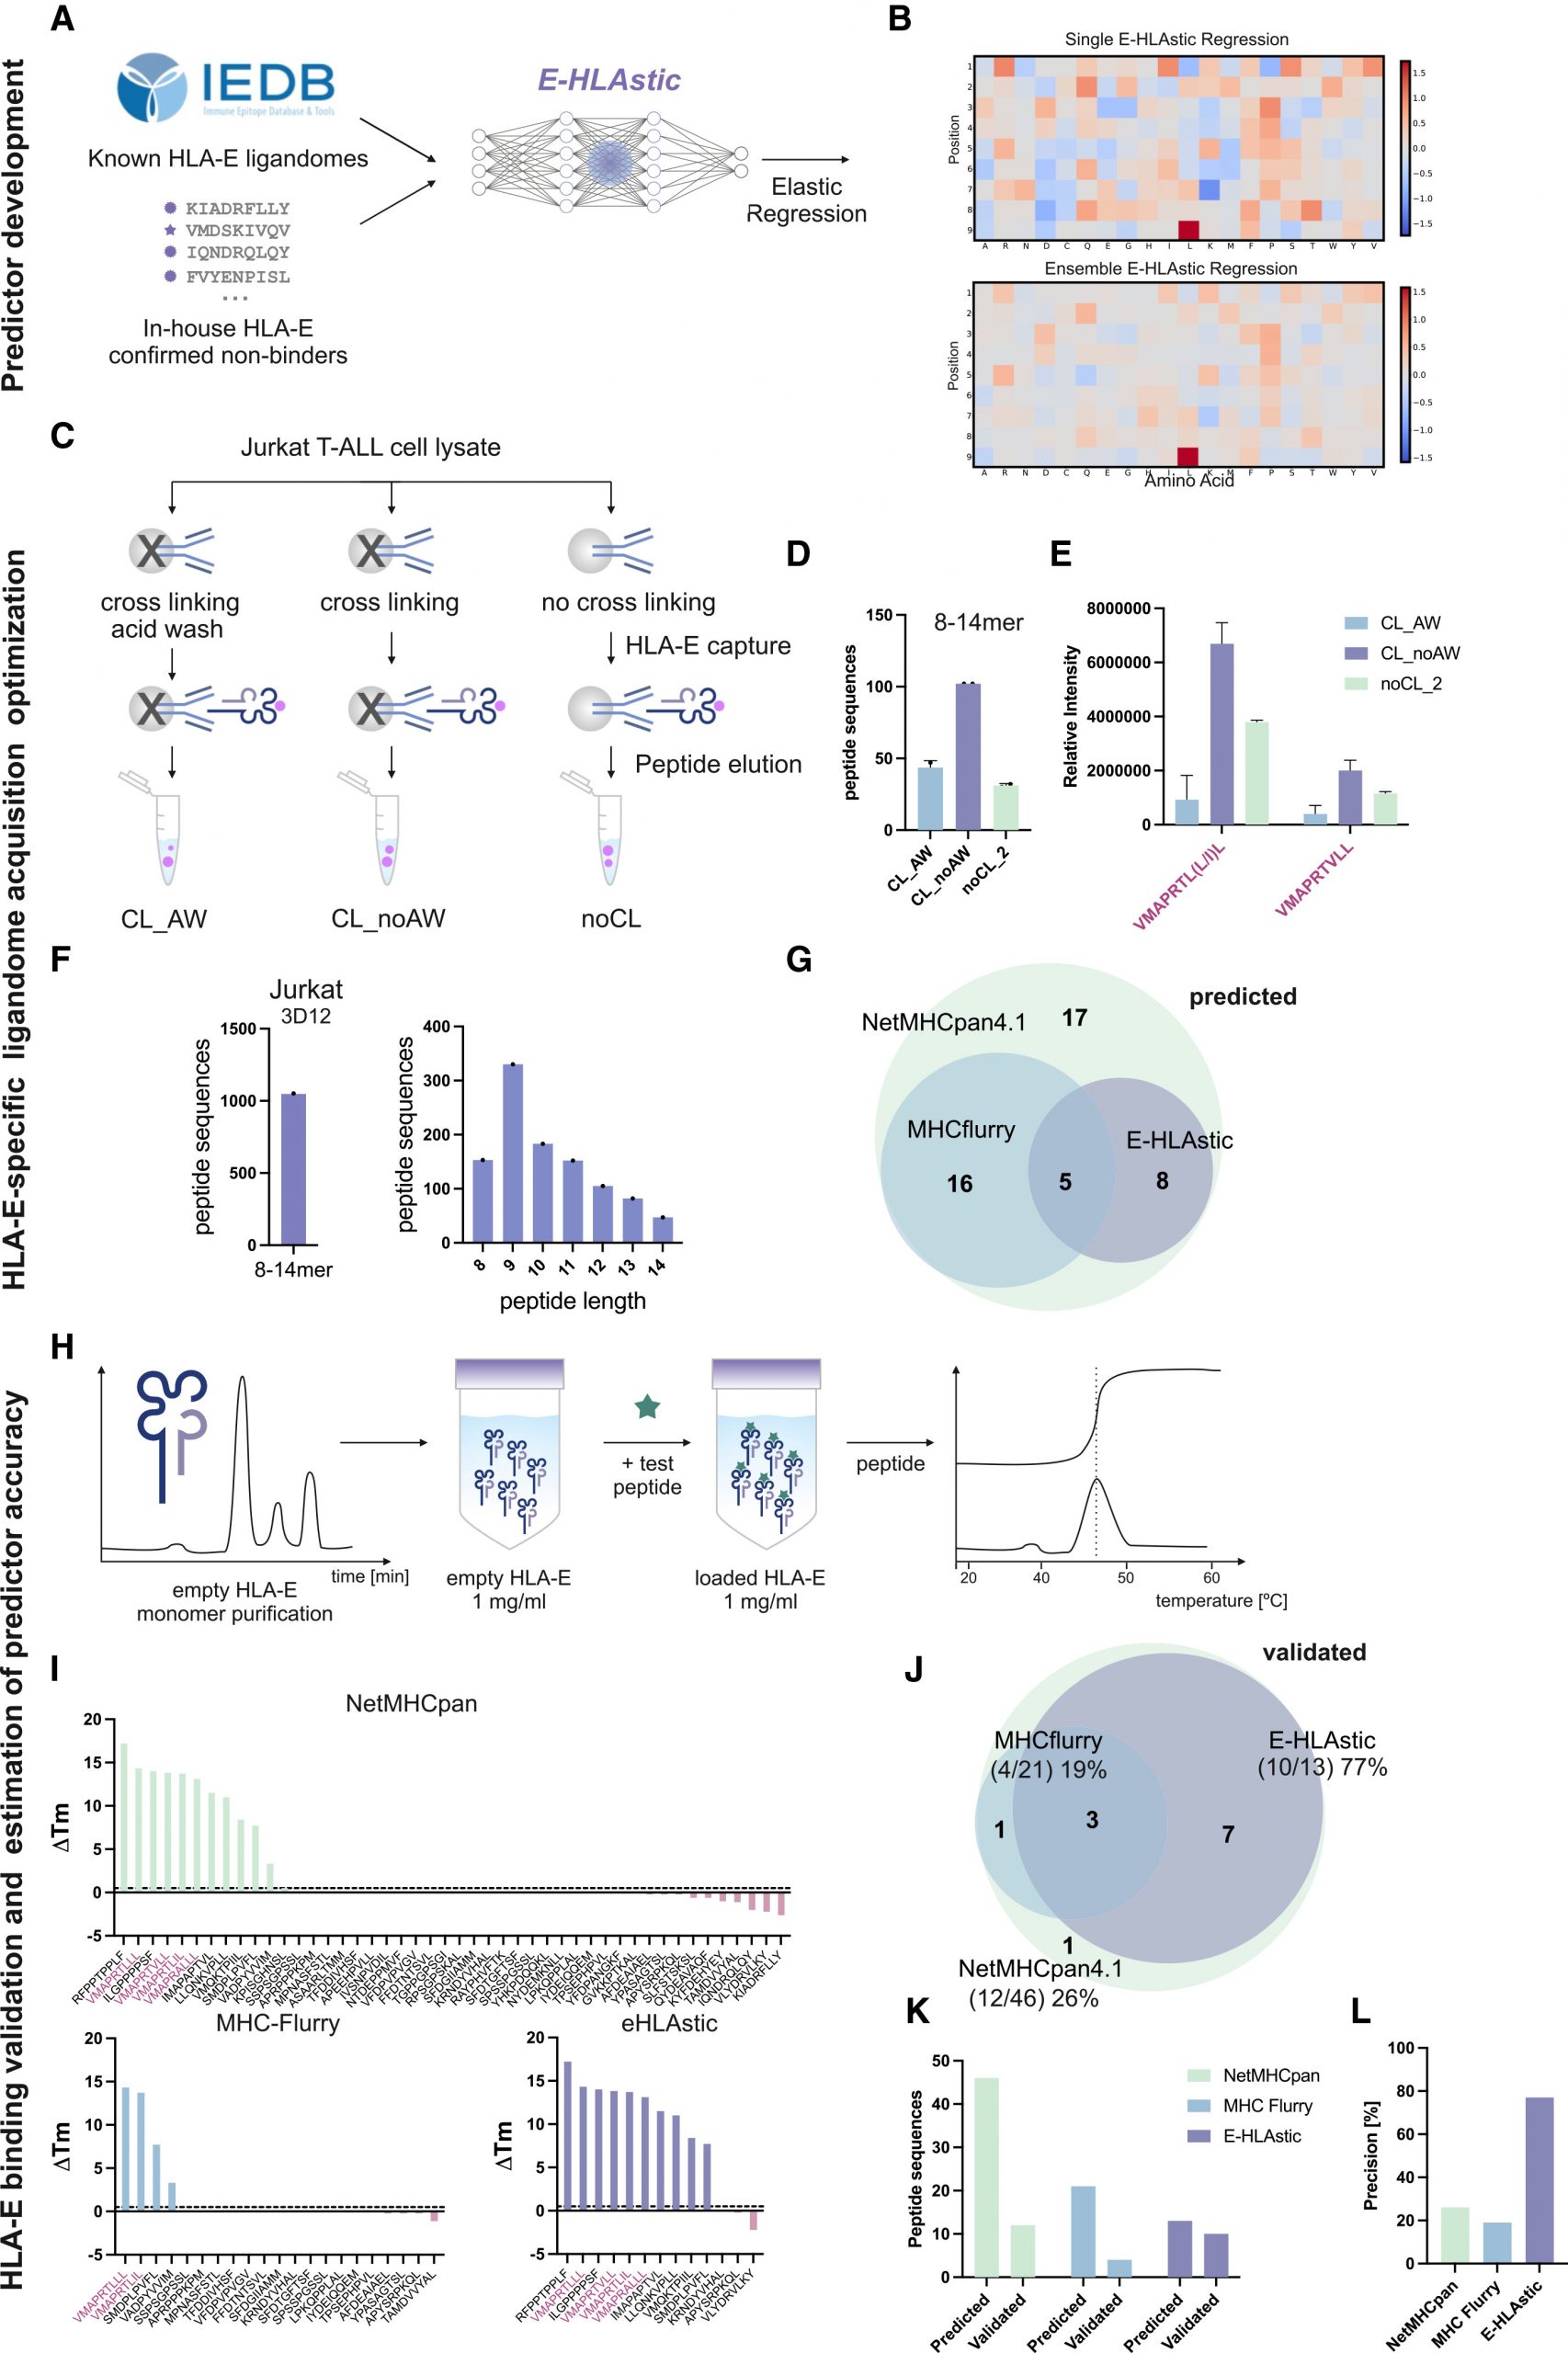
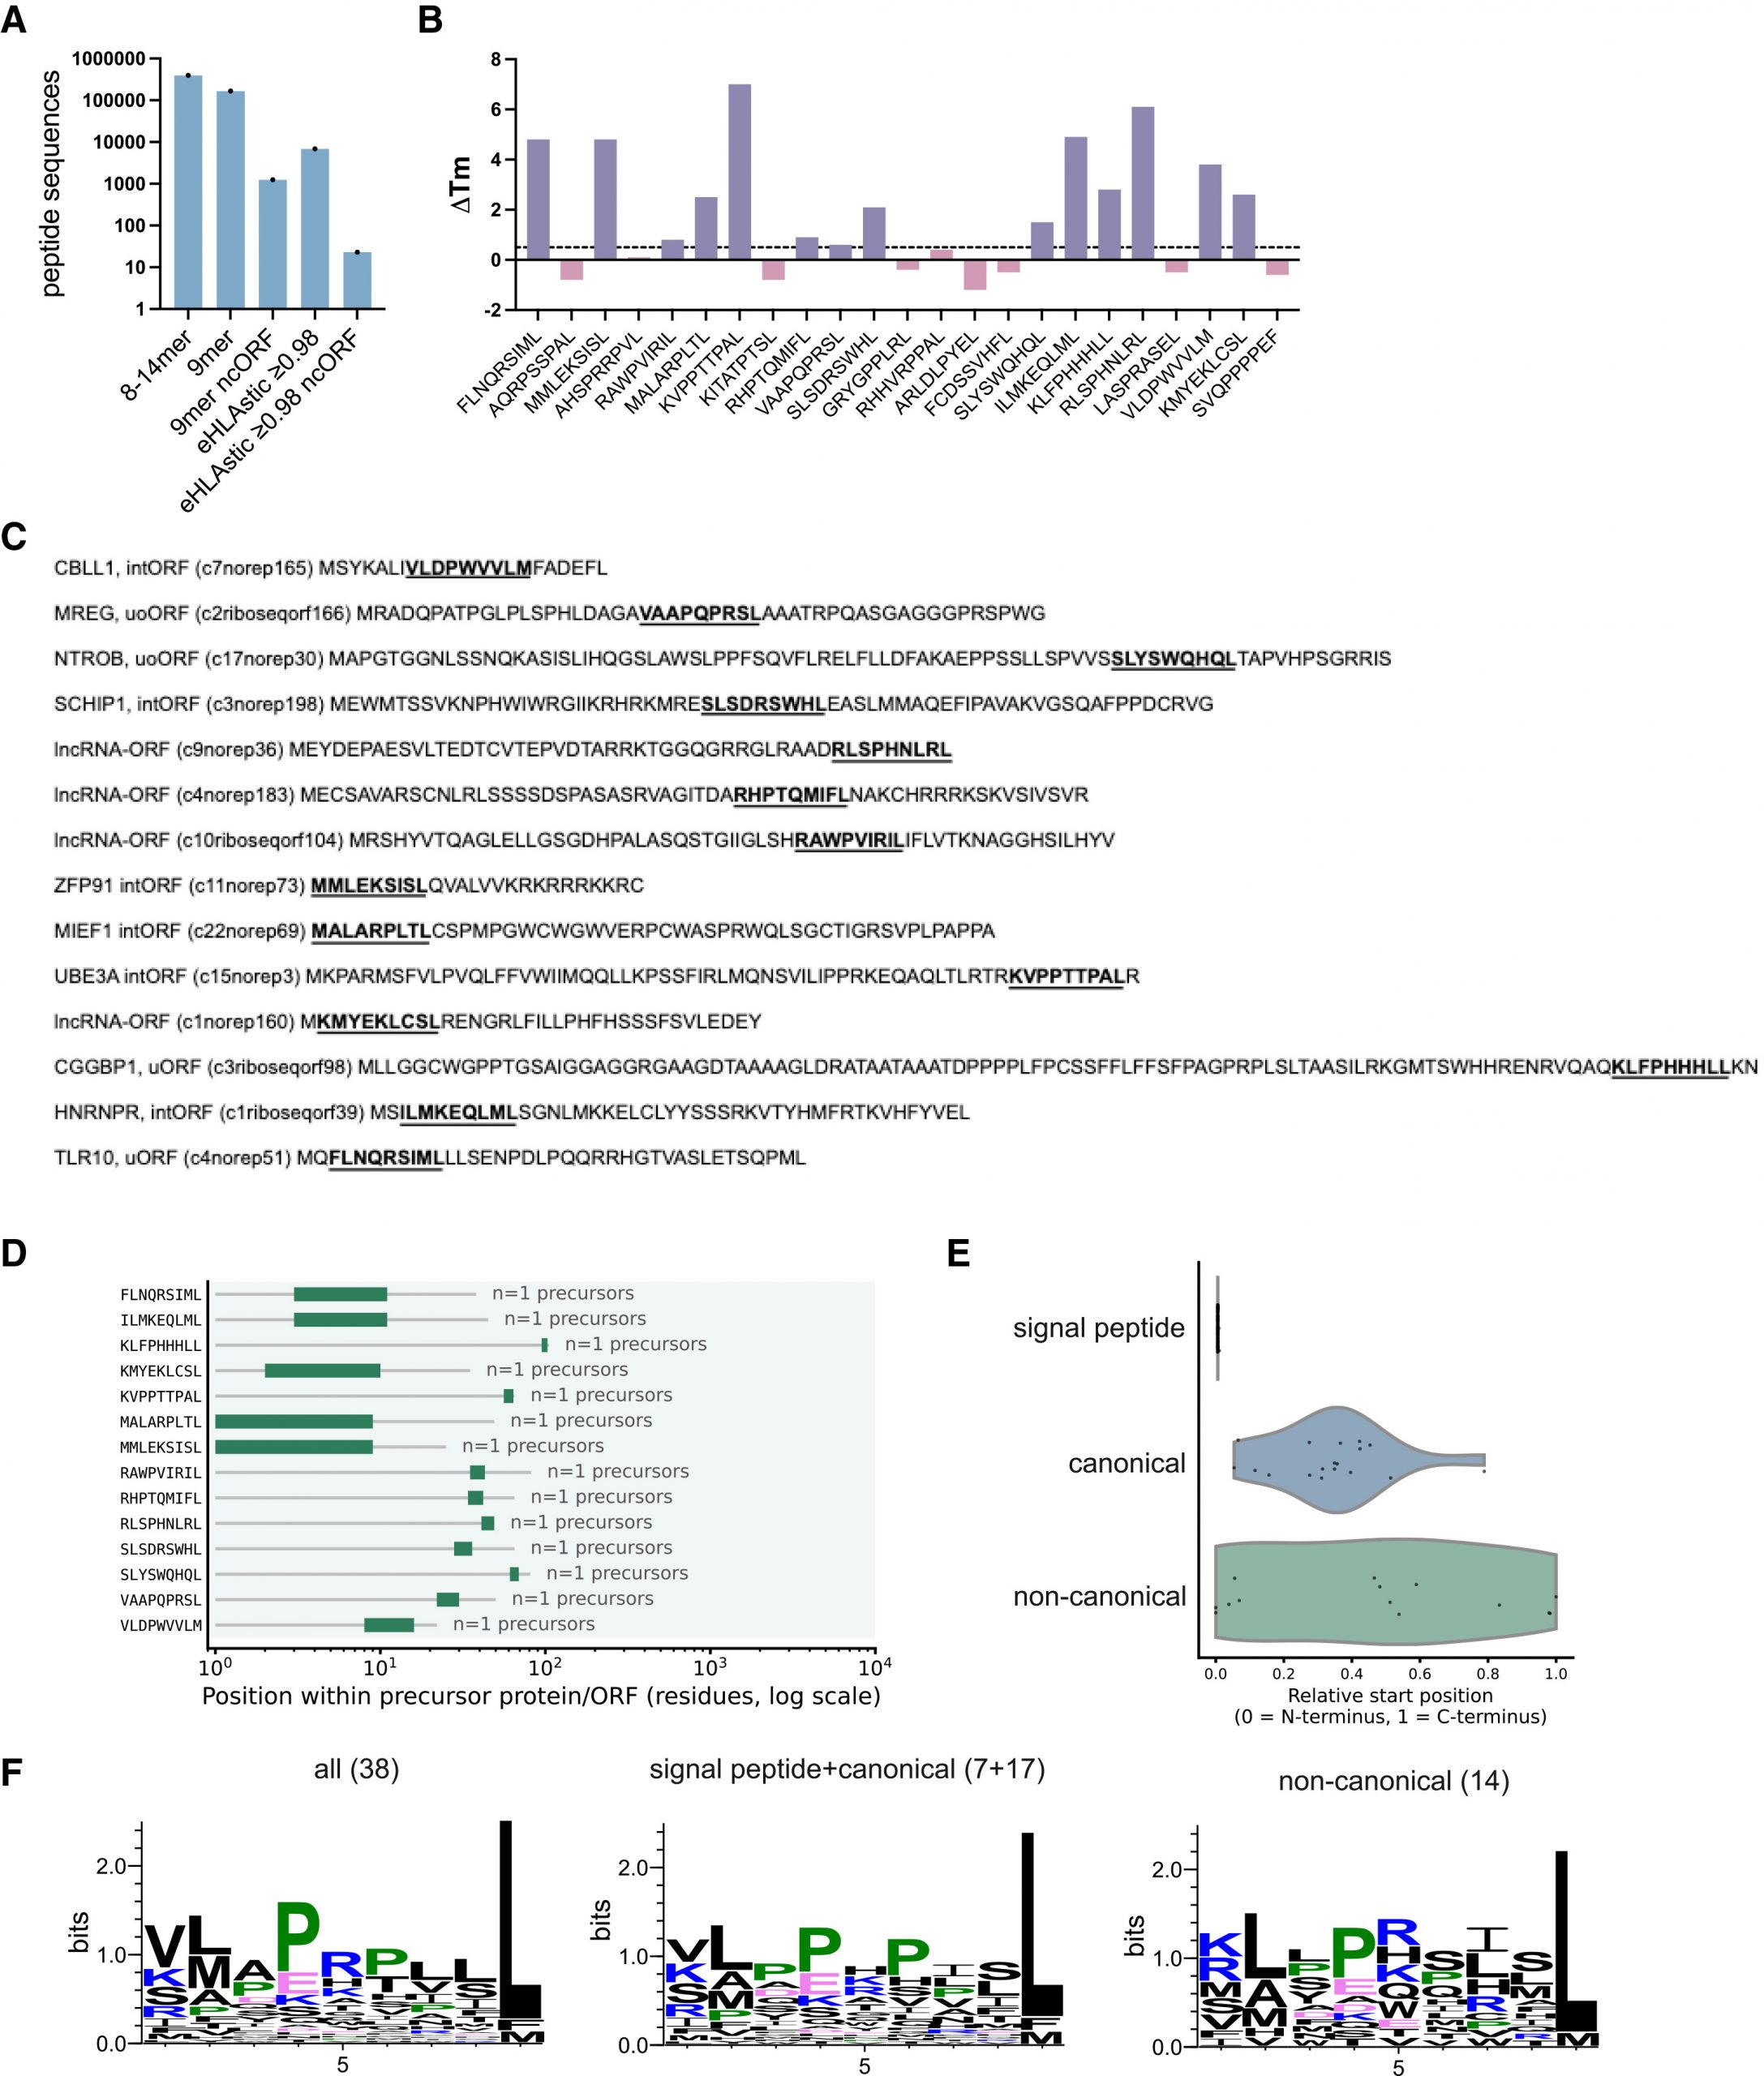
富集方案同样有讲究。作者比较了抗体交联与酸洗的组合,交联不酸洗的产出最高。两套 Jurkat 数据——3D12 专一富集的 1,052 条肽与 W6/32 泛 HLA 的 16,794 条肽——合计给出 30 条此前未被记录的 HLA-E 结合肽,全部经 nDSF(ΔTm ≥ 0.5°C)、荧光偏振竞争与细胞表面 HLA-E 稳定化实验确认:16 条来自经典编码基因但不走信号肽路线,14 条来自非经典 ORF。结合基序上,第 2 位与 C 端偏好疏水残基,第 4 与/或第 6 位富集脯氨酸,与病原来源 HLA-E 表位“主锚定位宽容、辅助位点挑剔”的既有画像吻合[7];预测结合而实验未通过的肽在 P3/P4 富集酸性残基,负空间同样清晰。
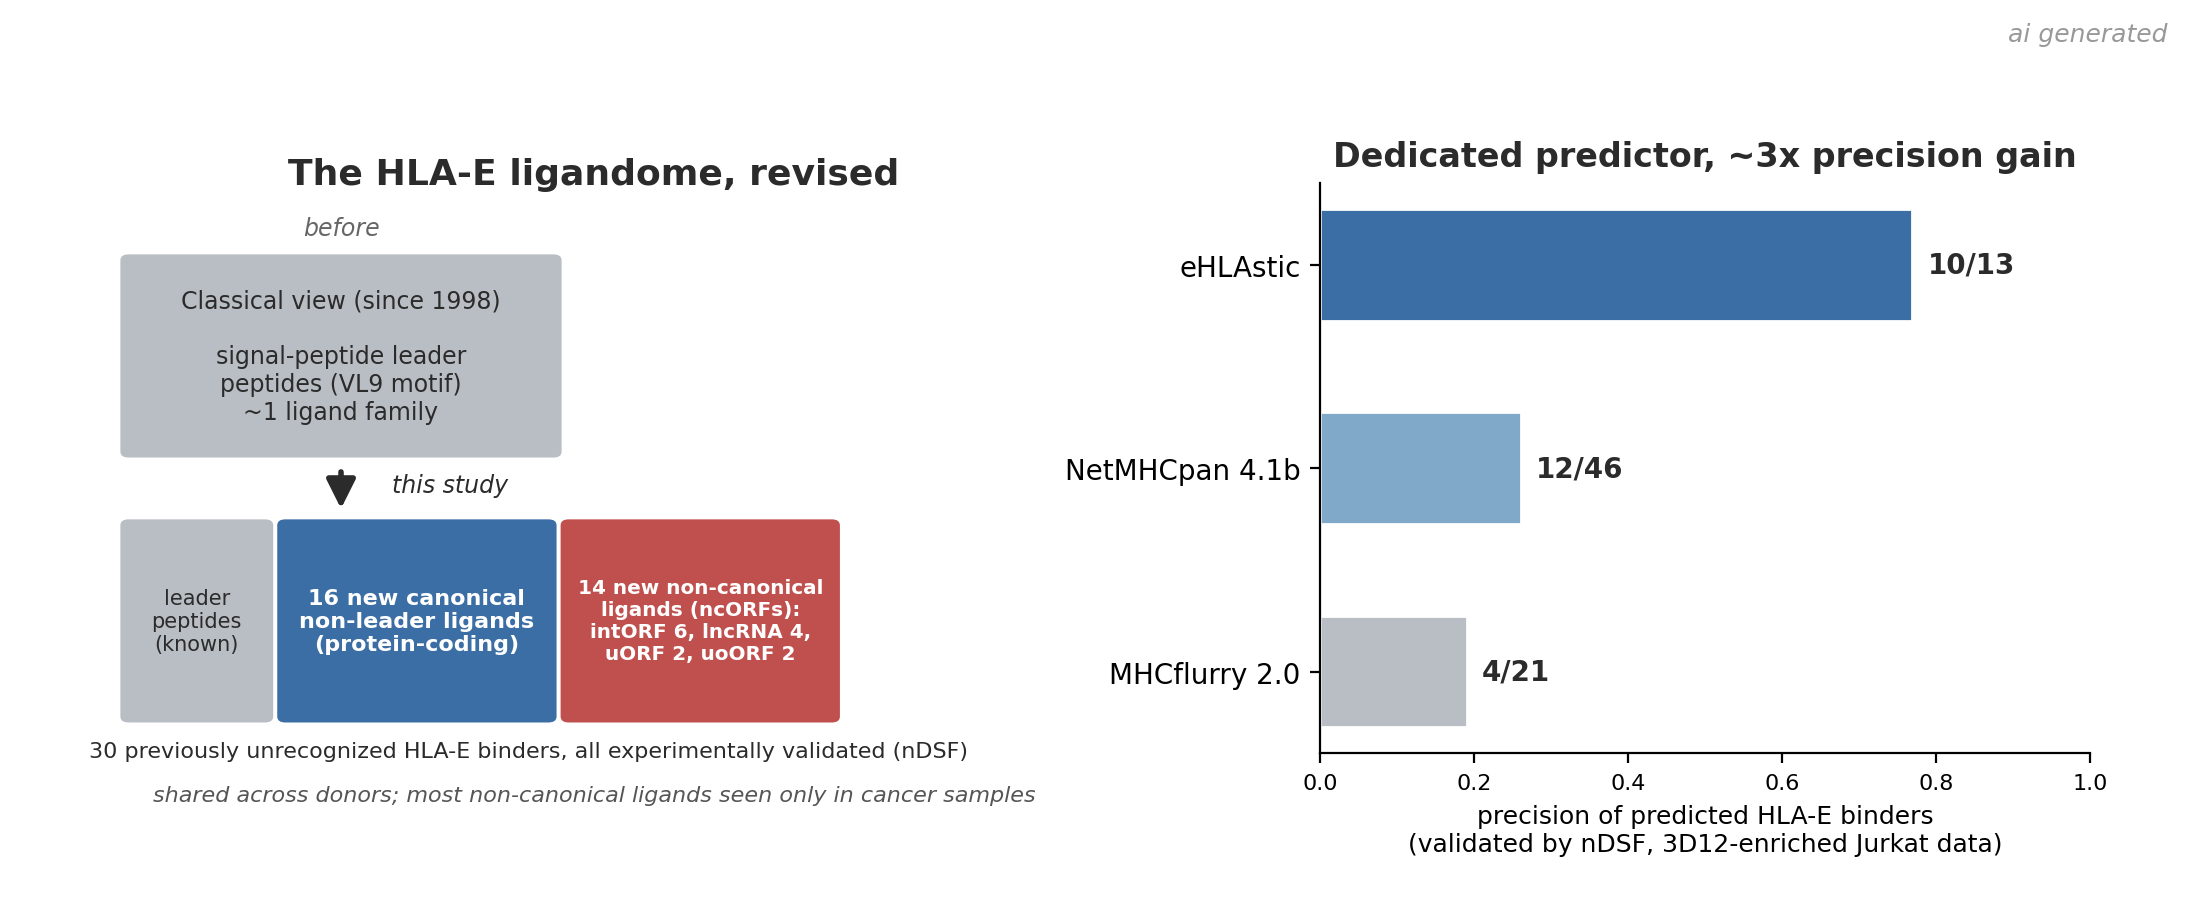
非经典 ORF 的部分把两条平行推进的线索接到了一起。167,646 条 9-mer 中 1,251 条来自 ncORF,eHLAstic 从中挑出 23 条,14 条(60.8%)验证结合:intORF 6 条、lncRNA 4 条、uORF 2 条、uoORF 2 条。肿瘤转录组里的隐秘翻译已在经典 HLA-I 免疫肽组中留下过证据[8][9],而 HLA-E 侧此前被认为只有前导肽一条路。这 14 条配体里除 SLYSWQHQL 外,其余在非疾病样本中均未检出——非经典 HLA 的配体组可能同样藏着肿瘤偏好。
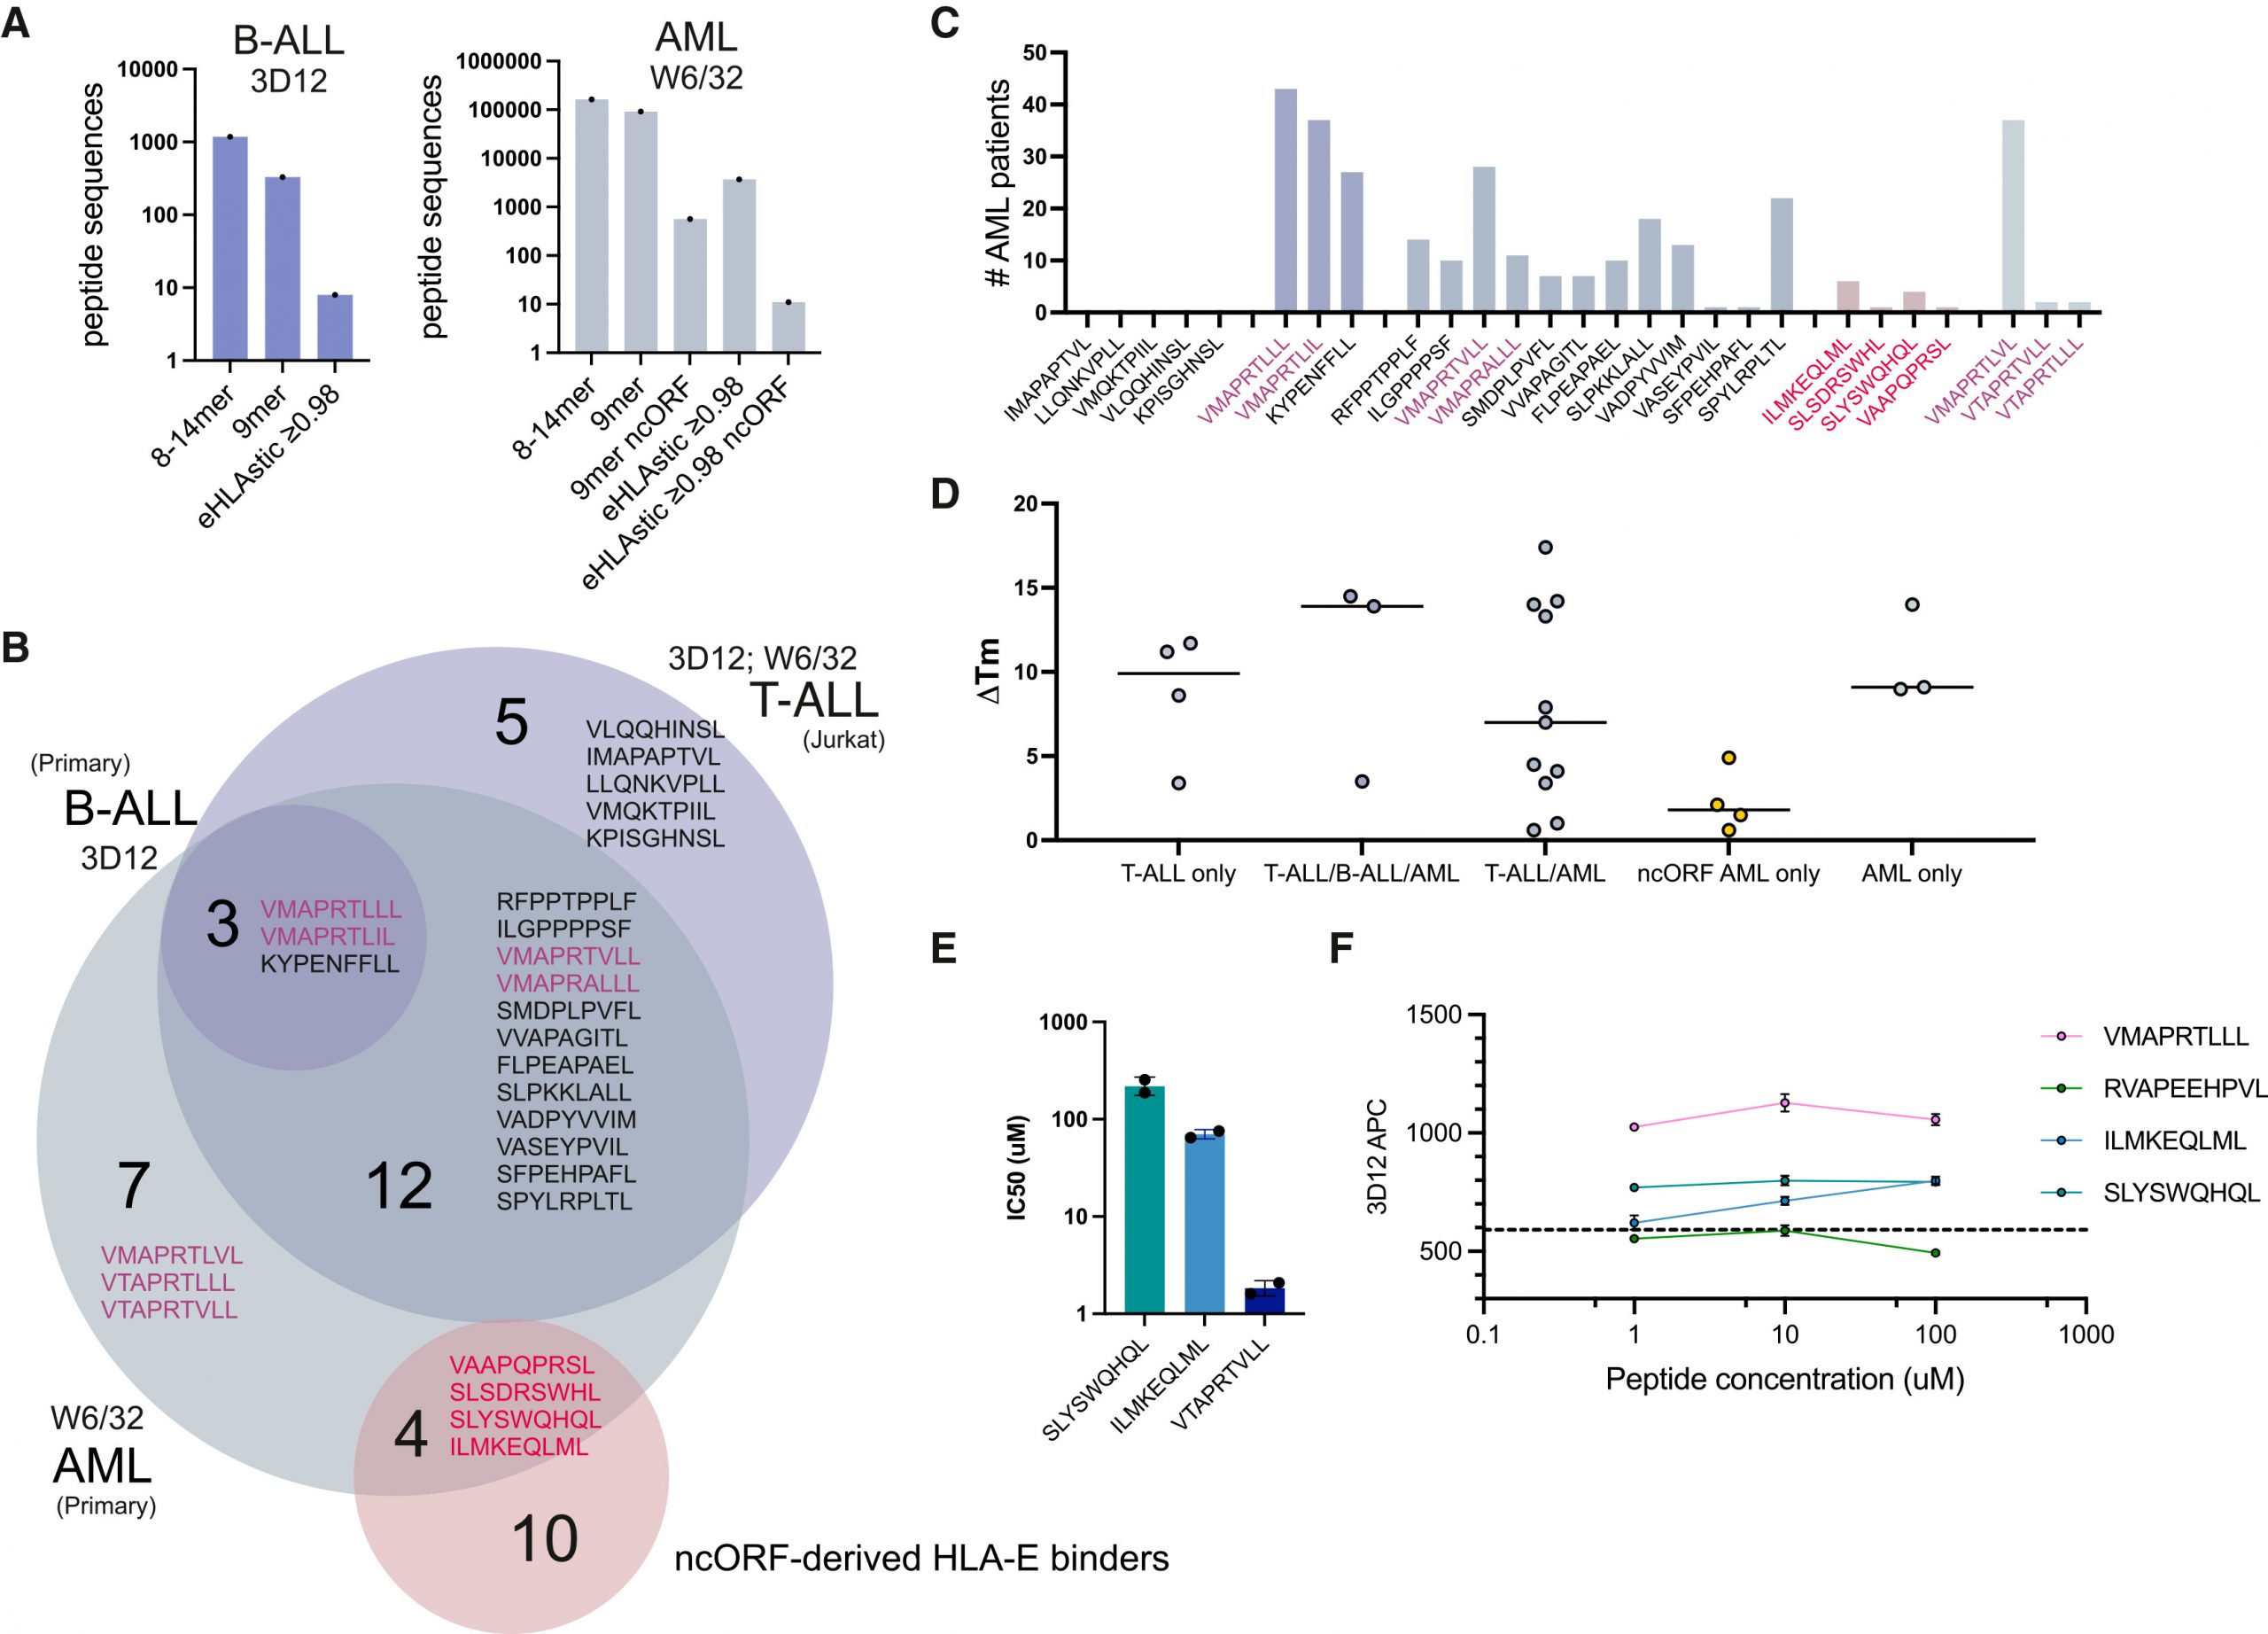
白血病数据是全文的临床落点。2 例原代 B-ALL 用 3D12 直接富集,47 例原代 AML 则是对已发表 W6/32 数据的再分析:92,147 条 9-mer 中 3,722 条被预测为 HLA-E 结合者。15 条验证配体在原代癌细胞中检出,11 条经典、4 条非经典;KYPENFFLL 单条肽出现在 27 例 AML 中,SLPKKLALL 出现在 18 例中,11/15 条在至少 4 名患者间共享。健康参照用的是 HLA Ligand Atlas——21 名健康供者 PBMC 加 2 例非疾病尸检骨髓、73,024 条 9-mer[10]——其中 6 条配体完全缺失,被作者定义为白血病相关:两条前导肽变异体 VTAPRTLLL 与 VTAPRTVLL,RTN3 的 SFPEHPAFL,以及三条 ncORF 来源的 SLSDRSWHL(SCHIP1 intORF)、SLYSWQHQL(CNTROB uoORF)、VAAPQPRSL(MREG uoORF)。扩展到 118 个泛癌数据集后,TLR10 intORF 来源的 FLNQRSIML 出现在 62 个数据集,ILMKEQLML 出现在 53 个,横跨血液肿瘤与实体瘤。
这份配体组的几处边界需要如实标注。“白血病相关”的判定是阴性证据,而阴性证据的成色取决于参照数据的灵敏度:作者自己承认,pan-HLA 实验回收不了全部 HLA-E 配体——低丰度配体在 DDA 采样下容易被漏掉,健康组织里“未见”与“不存在”之间隔着检出限。其次,呈递归属未定:HLA-E 与部分经典 HLA-I(如 HLA-A2)的结合偏好存在重叠,作者明确说不能排除若干配体同时由经典分子呈递,W6/32 再分析也无法区分是谁在载肽。第三,全文没有 T 细胞数据,nDSF 证明的是 pHLA 复合物的稳定性,离免疫识别还隔着亲和力、丰度与耐受三道坎。训练端只针对 9-mer,8–14 肽的世界被截去一角;配体组也如作者所陈是下限而非穷尽。
即便如此,这篇论文把 HLA-E 免疫肽组学从“前导肽加零星病原表位”的旧图景,推进到一份可检索、可预测、带实验验证的扩展清单。3D12 专属富集加专用预测器的组合,让非经典 MHC 的配体组第一次有了与经典 HLA 同规格的测量工具;而低多态性、患者间共享、跨癌种、偏好非经典来源这几个特征叠在一起,指向的正是现货型免疫治疗最需要的那类靶点——不需要为每位患者测序,只需要一个能稳定装载的 HLA-E 和一条在多数肿瘤里都能找到的肽。剩下的问题是免疫学问题:这些肽有没有 T 细胞可看。方法学已经把路铺到了 T 细胞实验室的门口。
参考文献
- Liao H, Quastel MN, Shepherd CM, Nicastri A, Kok LW, van Hateren A, et al. eHLAstic reveals an extended canonical and non-canonical HLA-E immunopeptidome in human cancers. Cell Rep. 2026;45:118216. DOI: 10.1016/j.celrep.2026.118216
- Braud VM, Allan DSJ, O’Callaghan CA, Söderström K, D’Andrea A, Ogg GS, et al. HLA-E binds to natural killer cell receptors CD94/NKG2A, B and C. Nature. 1998;391:795–799. DOI: 10.1038/35869
- Borrego F, Ulbrecht M, Weiss EH, Coligan JE, Brooks AG. Recognition of human histocompatibility leukocyte antigen (HLA)-E complexed with HLA class I signal sequence-derived peptides by CD94/NKG2 confers protection from cell lysis. J Exp Med. 1998;187:813–818. DOI: 10.1084/jem.187.5.813
- André P, Denis C, Soulas C, Bourbon-Caillet C, Lopez J, Arnoux T, et al. Anti-NKG2A mAb is a checkpoint inhibitor that promotes anti-tumor immunity by unleashing both T and NK cells. Cell. 2018;175:1731–1743. DOI: 10.1016/j.cell.2018.10.014
- Reynisson B, Alvarez B, Paul S, Peters B, Nielsen M. NetMHCpan-4.1 and NetMHCIIpan-4.0: improved predictions of MHC antigen presentation by concomitant motif deconvolution and integration of MS MHC eluted ligand data. Nucleic Acids Res. 2020;48:W449–W454. DOI: 10.1093/nar/gkaa379
- O’Donnell TJ, Rubinsteyn A, Laserson U. MHCflurry 2.0: improved pan-allele prediction of MHC class I-presented peptides by incorporating antigen processing. Cell Syst. 2020;11:42–48. DOI: 10.1016/j.cels.2020.09.001
- Walters LC, Harlos K, Brackenridge S, Ashworth RJ, Pilny A, Rozbesky D, et al. Pathogen-derived HLA-E bound epitopes reveal broad primary anchor pocket tolerability and conformationally malleable peptide binding. Nat Commun. 2018;9:3137. DOI: 10.1038/s41467-018-05459-z
- Attig J, Young GR, Cuadrado I, Machado L, Villar FR, Hydzik P, et al. LTR retroelement expansion of the human cancer transcriptome and immunopeptidome revealed by de novo transcript assembly. Genome Res. 2019;29:1578–1590. DOI: 10.1101/gr.248922.119
- Hofman DA, Dou J, Matic T, Sanchorawala D, Smits BW, van Lieshout S, et al. Translation of non-canonical open reading frames as a cancer cell survival mechanism in chronic hypoxia. Mol Cell. 2024;84:538–553. DOI: 10.1016/j.molcel.2023.12.003
- Marcu A, Bichmann L, Kuchenbecker L, Kowalewski DJ, Freudenmann LK, Backert L, et al. HLA Ligand Atlas: a benign reference of HLA-presented peptides to improve T-cell-based cancer immunotherapy. J Immunother Cancer. 2021;9:e002071. DOI: 10.1136/jitc-2020-002071
内容经AI校正和润色,审慎阅读