本文由WorkBuddy Agent撰写并直接通过WordPress API发布于笔者个人网站www.liangxiao.pro。内容可能存在不准确之处,仅供研究参考。
免疫肽组学的叙事重心几乎都在肿瘤上:从黑素瘤的新表位到个体化疫苗,MHC-I 配体组已经成了转化研究的标准接口。相比之下,细菌感染领域的免疫肽组学至今仍是一个小众分支,尽管它在技术逻辑上可能更”纯粹”——病原体基因组只有几百万碱基对,呈递给 T 细胞的肽段理应更容易被系统性地找全。9月末发表于 PLoS Pathogens 的一项工作把这个问题拉回了视野:捷克国防大学军事医学院 Stulik 与 Link 团队用 MHC-II 免疫肽组学系统绘制了土拉弗朗西斯菌(Francisella tularensis)减毒活疫苗株 LVS 感染树突状细胞时呈递的细菌肽段,鉴定出57条肽、24个表位区、23个来源蛋白,并在小鼠模型中验证出10条 CD4 T 细胞表位,其中5条为显性表位;一支由这5条显性表位构成的肽疫苗,能在强毒株攻击下压低器官细菌负荷,却不足以提供完全保护[1]。
这项工作选的病原体本身就有故事。土拉菌病(tularemia)由胞内革兰阴性菌 F. tularensis 引起,其 A 型亚种吸入剂量低至10个细菌即可致死,长期被列为生物防御一级病原,疫苗研发因此从未停止[2]。目前最接近实用的是活疫苗株 LVS,也是唯一有人体临床数据的候选,但它的减毒遗传基础至今没有完全定义,对气溶胶攻毒的保护也有限[2][3]。小鼠模型中 αβ T 细胞对存活与清菌不可或缺,CD4 与 CD8 亚群在不同攻毒条件下各有贡献[4];然而尽管 CD8 表位早有全基因组预测加验证的82个记录[8],CD4 T 细胞识别的细菌抗原却长期只有零星几个——通过 T 细胞杂交瘤对重组蛋白文库的筛选,人们先后确认了膜脂蛋白 LpnA(Tul4)的显性表位、以及 DnaK、GroEL、IglB、IglC 和核糖体蛋白 L3 上的若干亚显性表位[6][7]。对一支以 T 细胞介导保护为核心机制的疫苗而言,这份抗原清单显然过于单薄。
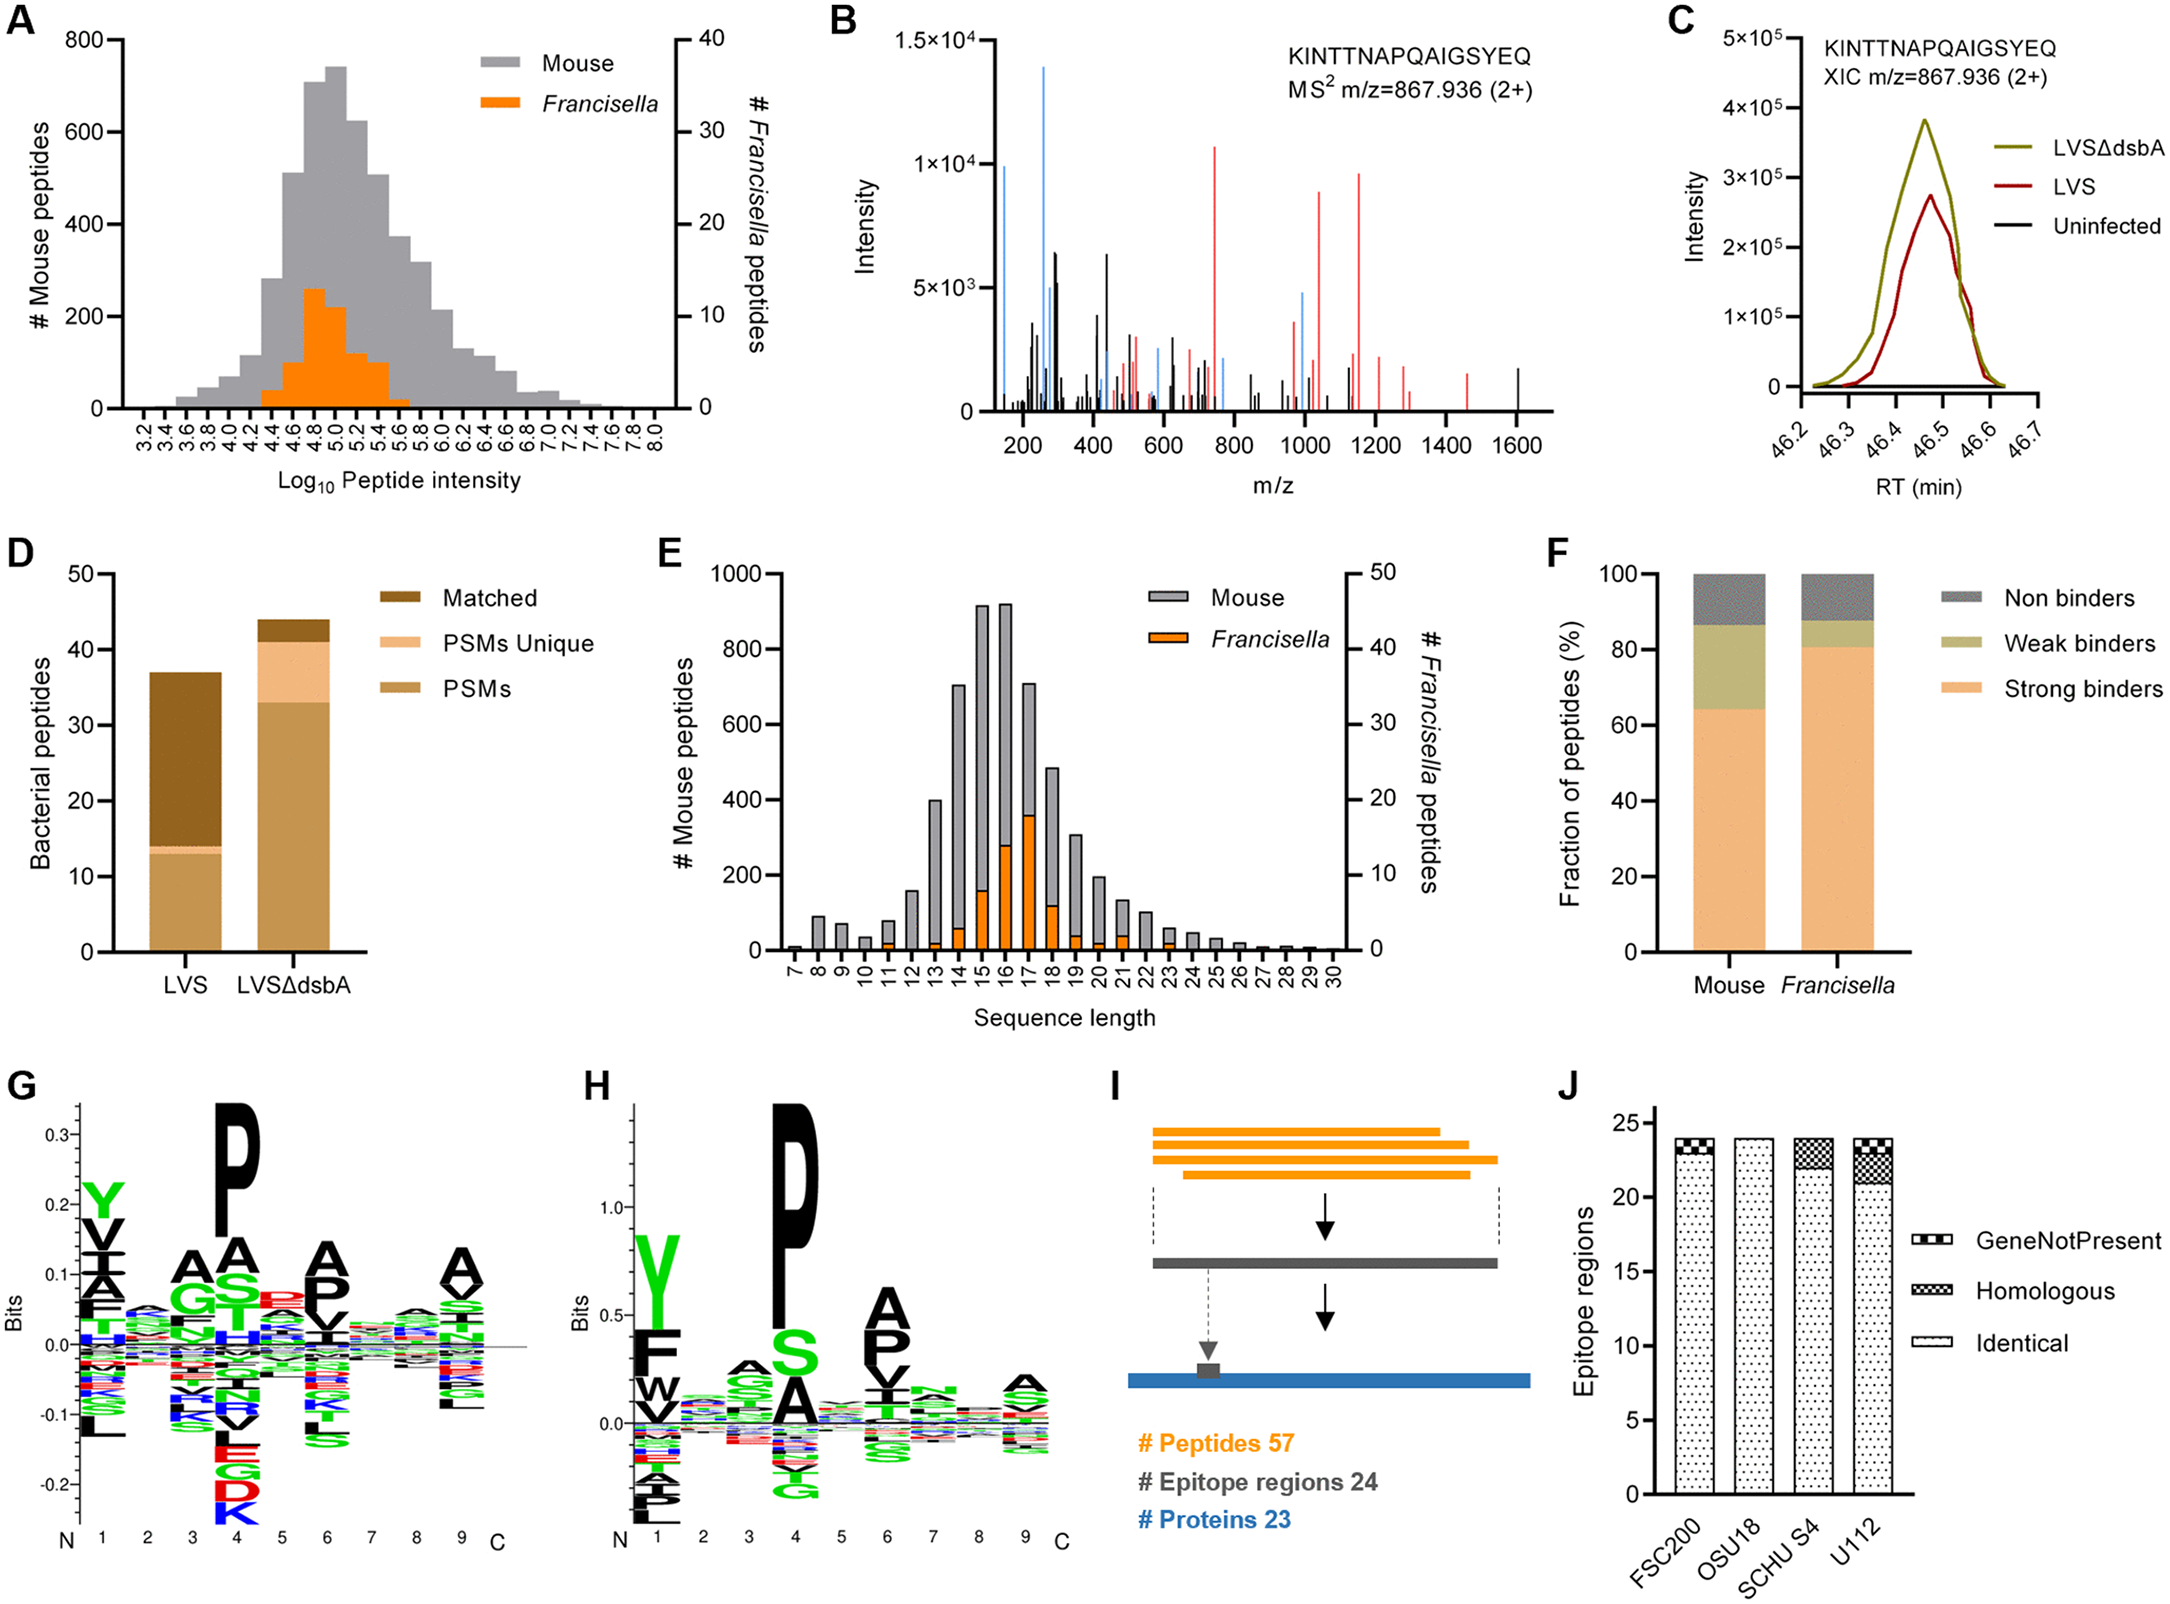
实验设计沿用了免疫肽组学的经典范式:BMDC 感染 LVS 或其 dsbA 缺失突变株(后者吞噬体逃逸受损、在吞噬溶酶体标志阳性液泡中滞留更久,理论上与 MHC-II 抗原加工途径的互作更强),用 Y-3P 单抗免疫沉淀 I-Ab 复合物,酸洗脱后经两步固相萃取上 Q Exactive 做 HCD 采集;检索走 Proteome Discoverer 内嵌 Mascot 的无酶限制模式,Percolator 控 q 值后,再对细菌肽逐一人工核查感染组与对照组的提取离子色谱[1]。最终在主数据集中于5,500条左右的内源小鼠肽之外确认了79条高置信细菌肽、对应57条非冗余序列。LVSΔdsbA 呈现的细菌肽确实多于野生型,且从匹配特征看主要是量的差异而非质的差异;这与”延长吞噬体滞留、增强交叉呈递”的预期方向一致,但作者也坦承这一机制仍需后续实验确认。
三个结构性观察值得展开。其一是稀疏性:细菌肽只占鉴定数量的约0.8%、总强度的约0.1%,即便在感染条件下也是免疫肽组里的”稀有物种”,这为后续的灵敏度瓶颈埋下伏笔。其二是高丰度偏好:将细菌自身蛋白质组按丰度排序,23个 MHC-II 抗原显著富集于高丰度端,与结核分枝杆菌 MHC-II 抗原研究的结论一致[10];功能上翻译机器、脂代谢与细胞壁生物合成占主导,其中 FTL_1678、DacD、FopA1 等细胞壁相关蛋白在沙门菌、结核、李斯特菌等其他病原中也有 MHC-II 抗原的记录[9][10][11][12][13]。其三是保守性与异质性并存:表位区序列在 LVS、FSC200、SCHU S4、U112 间几乎完全一致或仅有一个取代,为跨株保护留下了空间;而与小鼠蛋白质的序列同源性极低,仅三个表位区在允许五个错配下达到六成以上的相似度——这正是幼稚 T 细胞库得以对”非我”做出反应的结构前提。
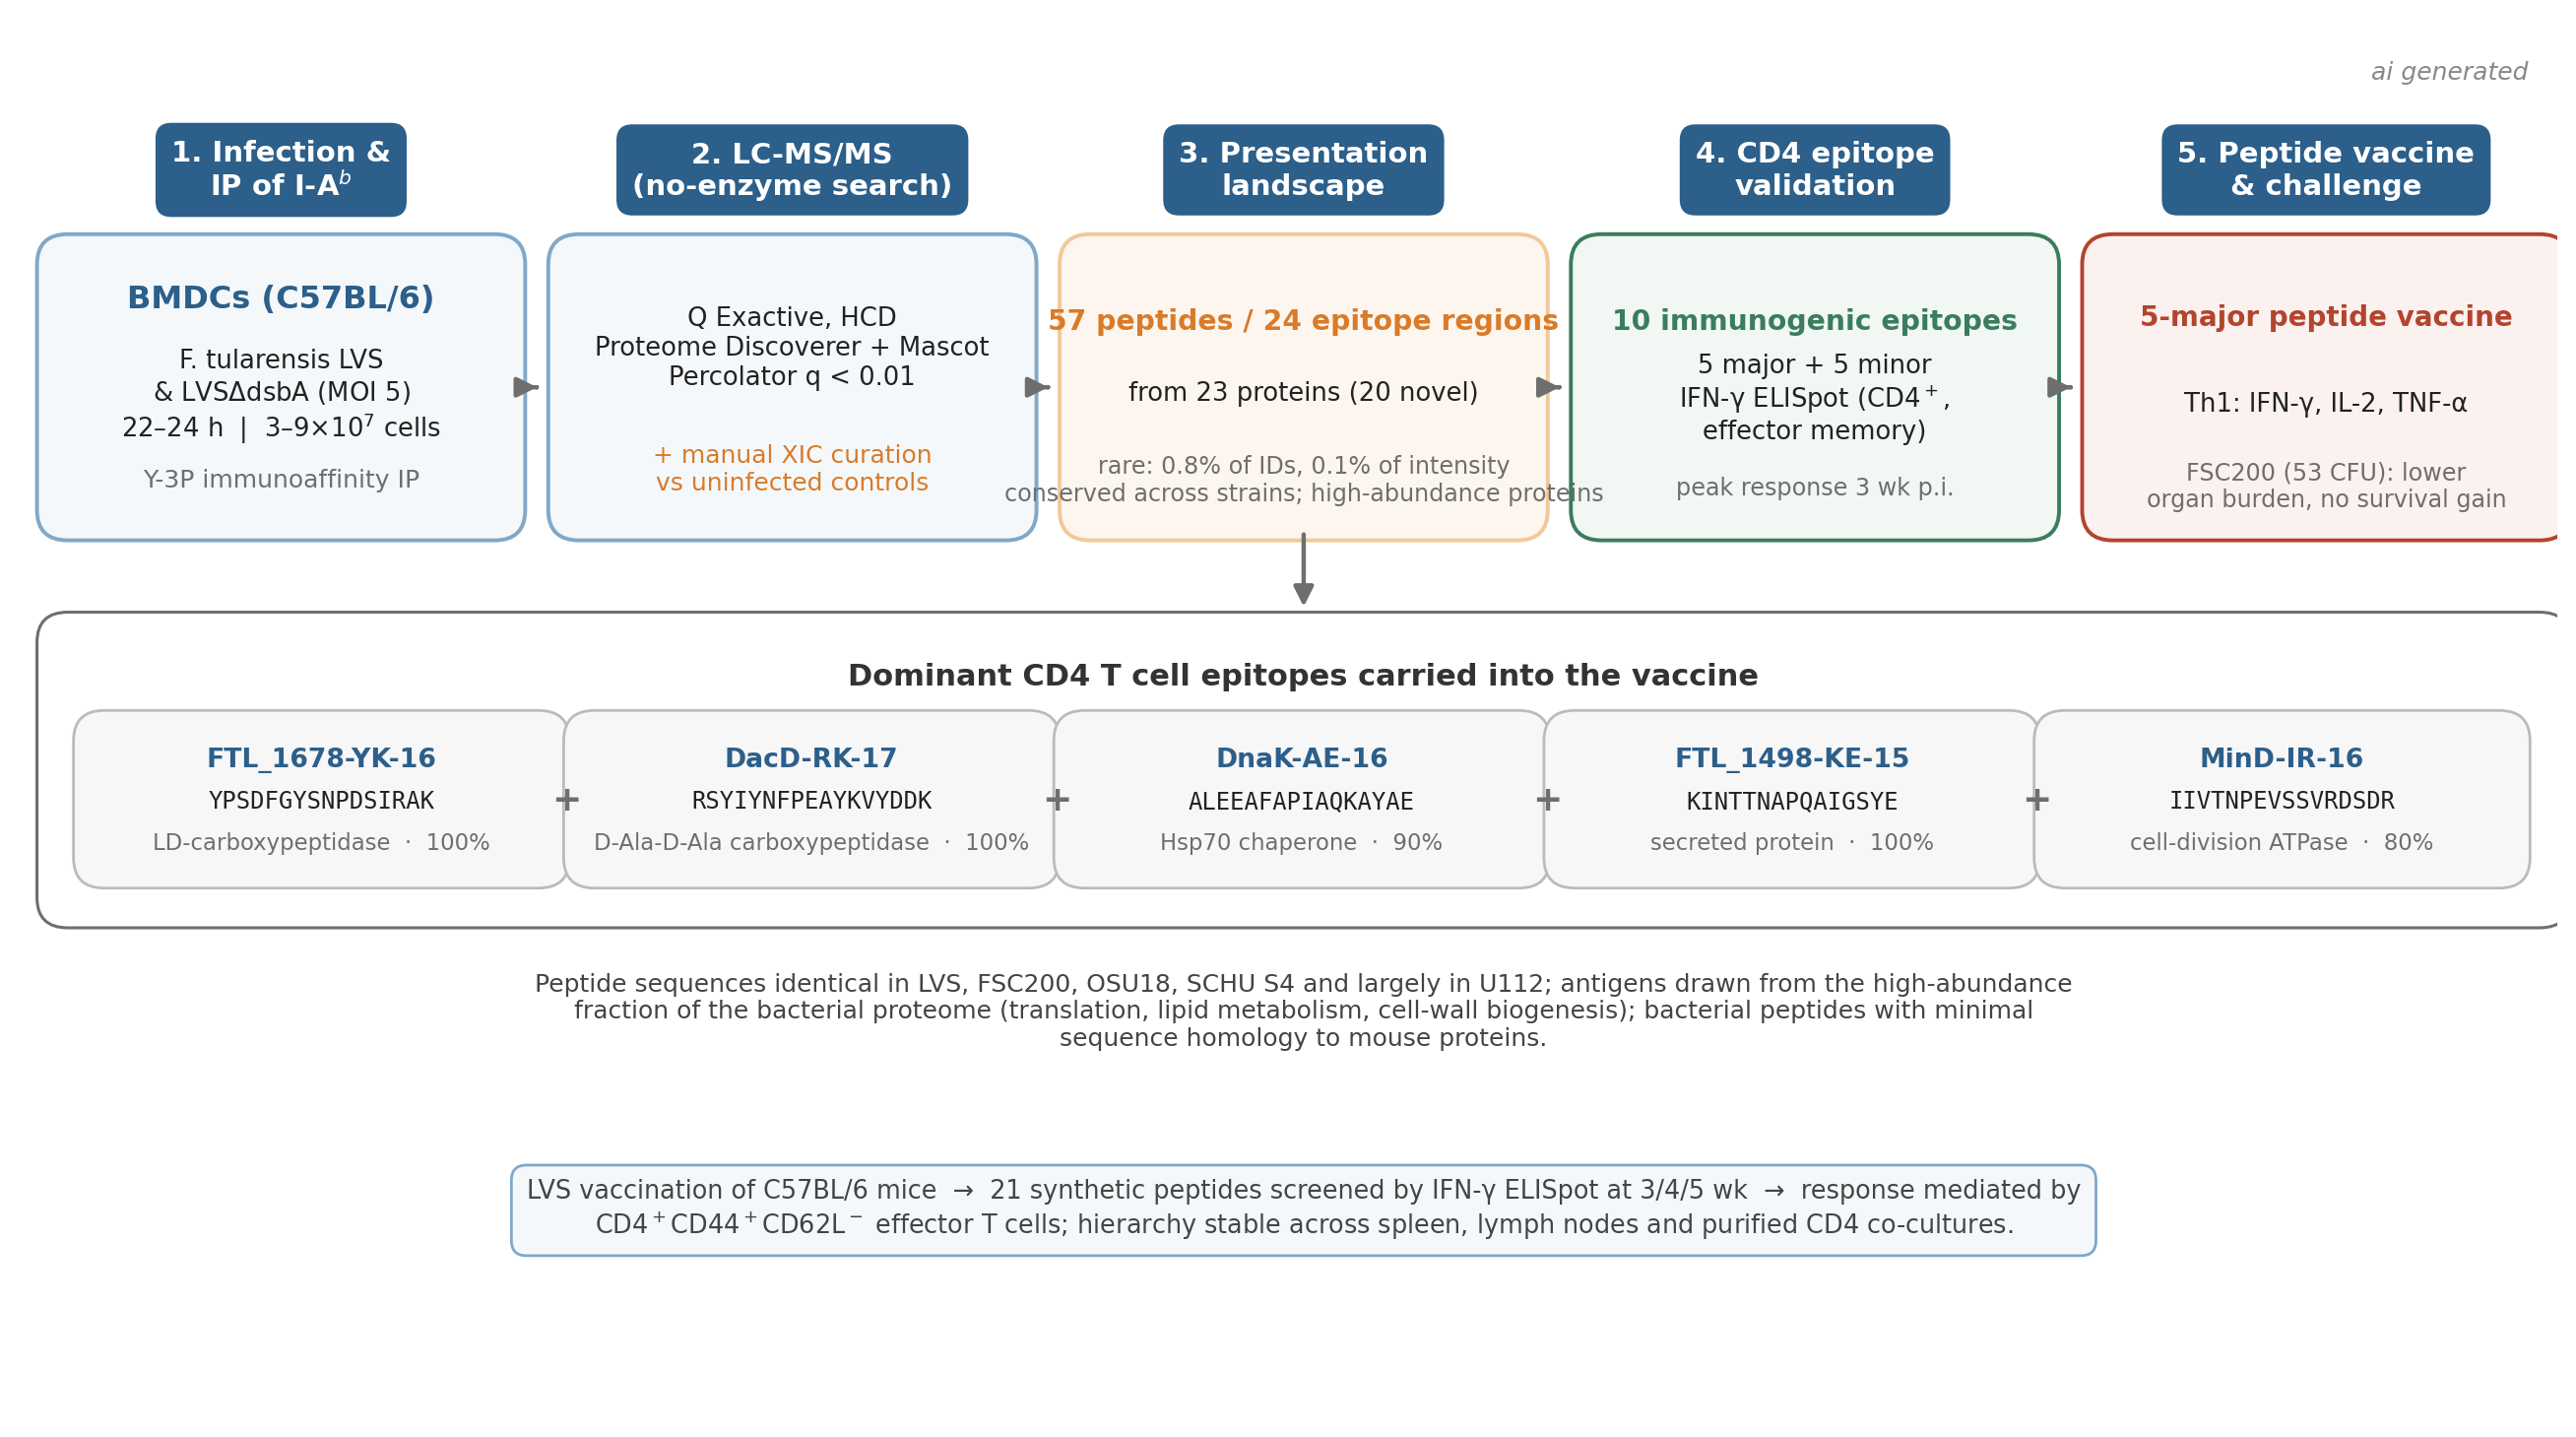
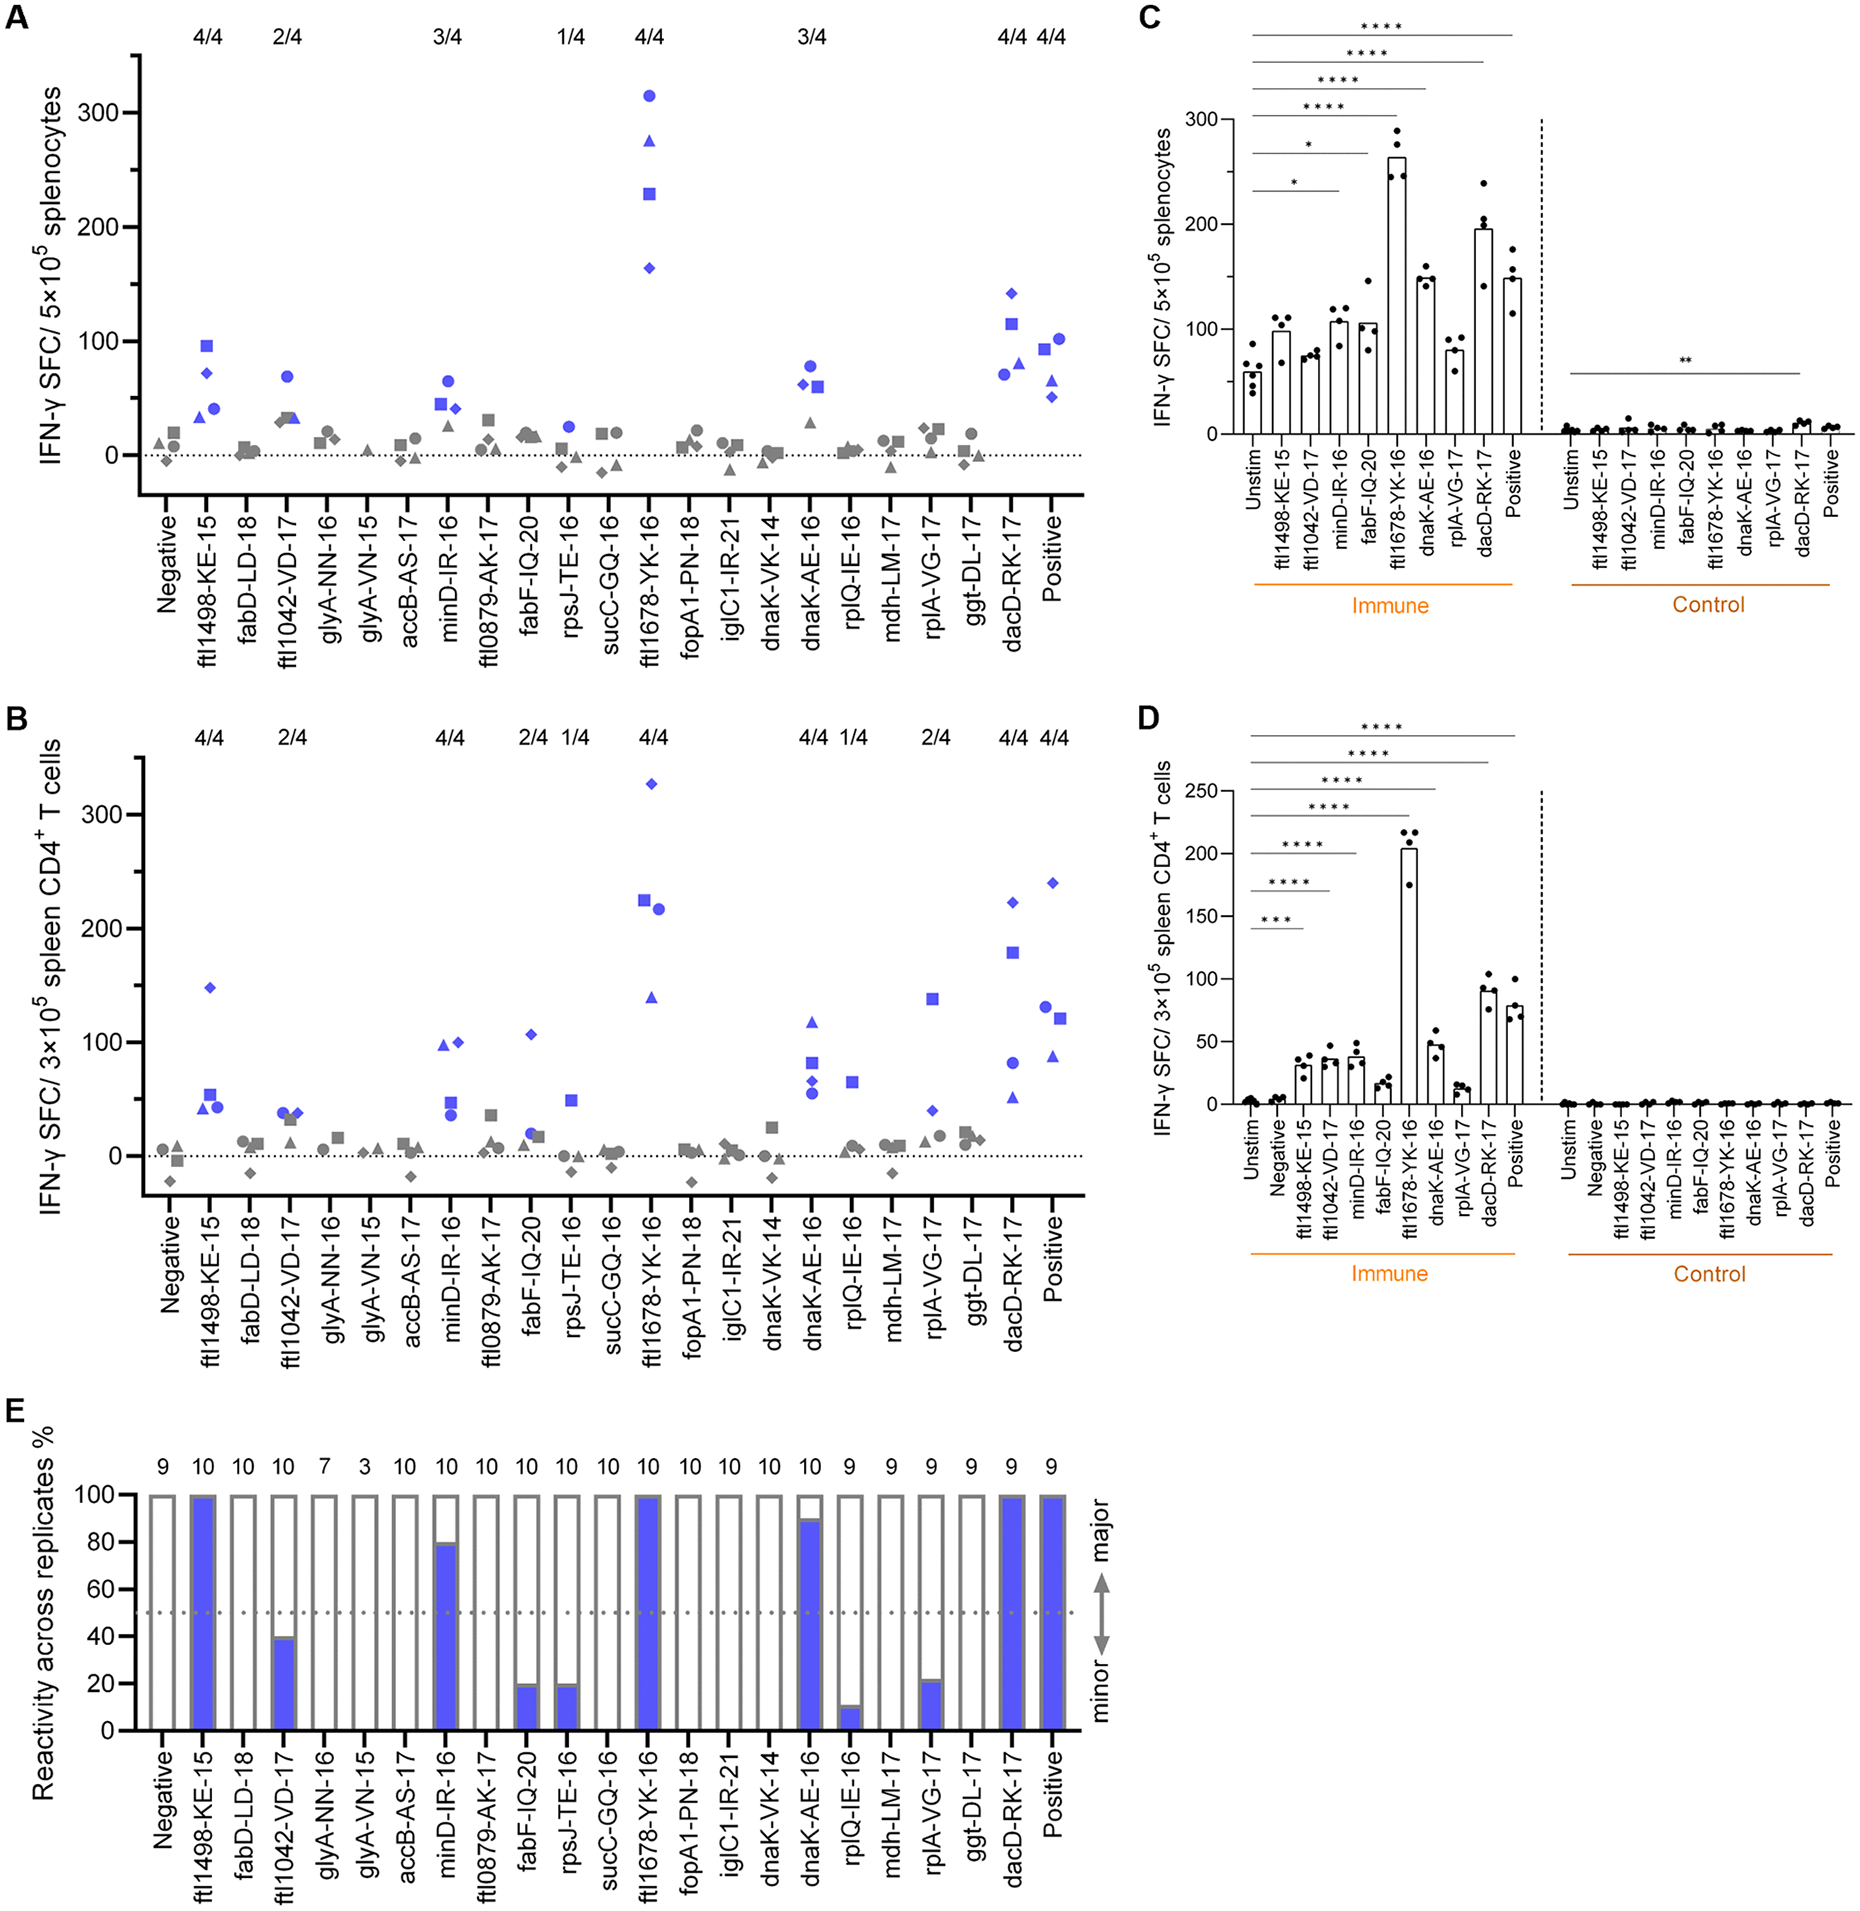
免疫原性验证的部分是全文最扎实也最耐人寻味的段落。作者从57条肽中按纯质谱证据挑出21条合成,在 LVS 免疫的 C57BL/6 小鼠脾细胞与淋巴结细胞中做 IFN-γ ELISpot,反应在免疫后3周达到峰值并随时间递减,纯化 CD4 T 细胞与 naive B 细胞的共培养确认了应答亚群,流式进一步将其定位于 CD44 阳性 CD62L 阴性的效应记忆池。10条肽在至少一次免疫中激发显著应答,按跨免疫重复的阳性频率分为5条显性与5条隐性表位,且反应强度与识别频率正相关——这与痘病毒 CD8 表位研究中”反应越强、越容易被稳定检出”的规律一致[14],也让人想起 MHC-II 免疫支配层级系统刻画的工作[15]。
| 表位 | 序列 | 来源蛋白与功能 | 分类 | 跨免疫识别频率 |
|---|---|---|---|---|
| FTL_1678-YK-16 | YPSDFGYSNPDSIRAK | LD-羧肽酶(肽聚糖回收) | 显性 | 10/10 |
| DacD-RK-17 | RSYIYNFPEAYKVYDDK | D-Ala-D-Ala 羧肽酶(细胞壁) | 显性 | 10/10 |
| FTL_1498-KE-15 | KINTTNAPQAIGSYE | 分泌蛋白 | 显性 | 10/10 |
| DnaK-AE-16 | ALEEAFAPIAQKAYAE | Hsp70 分子伴侣 | 显性 | 9/10 |
| MinD-IR-16 | IIVTNPEVSSVRDSDR | 细胞分裂 ATP 酶(毒力因子) | 显性 | 8/10 |
| FTL_1042-VD-17 | VTIAYKGTTPVIAYEDD | 肽酰脯氨酰顺反异构酶 | 隐性 | ≤50% |
| FabF-IQ-20 | IGMGGFAAARALSTRNDDPQ | 脂肪酸生物合成 | 隐性 | ≤50% |
| RpsJ-TE-16 | TGAQVKGPIPLPVRKE | 30S 核糖体蛋白 S10 | 隐性 | 10–20% |
| RplA-VG-17 | VAVFAKGPAADAAKEAG | 50S 核糖体蛋白 L1 | 隐性 | 10–20% |
| RplQ-IE-16 | IELVDRPQVEEAADEE | 50S 核糖体蛋白 L17 | 隐性 | 10–20% |
10 条 CD4 T 细胞免疫原表位一览。显性/隐性按跨免疫重复中显著应答的频率划分(显性 >50%)。数据来源:Laskova et al. 2026[1]。
两个细节尤其能说明直接测量呈递的价值。过去十五年土拉菌病 CD4 表位研究的”明星抗原”LpnA(Tul4),其已知表位在这次免疫肽组学中完全缺席;而 DnaK 上的两条新表位落在与旧表位完全不同的蛋白区域,只有 IglC 的表位与此前杂交瘤筛选的结果重合[1][6][7]。这并不是说旧数据错了——杂交瘤与重组蛋白文库测的是”能不能被识别”,免疫肽组学测的是”感染细胞真的呈递了什么”,两套证据的交集才接近完整的图景;但显性表位 FTL_1678 与 DacD 的反应强度甚至超过 LpnA 这个曾经的参照系,足以提醒我们:以可溶性重组蛋白为基础的表位筛选,天然偏向于高抗体应答的可溶性抗原,而对真实呈递景观的覆盖是另一种抽样。顺带一提,DacD 的百日咳同源物恰好是人类 CD4 T 细胞免疫显性抗原[17],细菌细胞壁加工酶在 MHC-II 呈递中的反复出现,可能不只是巧合。
肽疫苗部分则是一份诚实到近乎残酷的汇报。5条显性表位混合免疫诱导的 Th1 应答(IFN-γ、IL-2、TNF-α)在数值上比 LVS 活菌免疫高约20倍,但面对53 CFU 强毒株 FSC200 的皮下攻击,结果只是体重曲线下降更缓、第四天脾与肝的细菌负荷显著降低、中位生存从6天延至7天(无统计学差异)——早期控制,而非保护。作者给出两个解释:表位在强毒株感染中未必都被有效呈递;以及仅靠 CD4 应答可能不足以对抗高毒力攻击,这与 A 型强毒株研究中 CD4/CD8 缺一不可的结论呼应[4][5]。他们还坦率指出小鼠模型本身过于敏感,Fisher 344 大鼠才是更可预测的疫苗评价平台。这种不把”免疫原性”偷换为”保护性”的克制,在当前的疫苗学论文里并不常见。
从质谱的角度看,这项研究的技术配置其实相当”传统”:3–9×10^7 个 BMDC 一次免疫沉淀、Q Exactive 平台、Mascot 无酶检索加逐条人工核查 XIC,整套流程与肿瘤免疫肽组学十年前没有本质区别。作者在讨论中直言当前免疫肽组的覆盖”尚未完成”——考虑到细菌肽只占强度0.1%的稀疏性,这话既是对自身工作边界的诚实陈述,也可以读成整个细菌免疫肽组学领域的现状写照。肿瘤领域在 DIA、FAIMS、Astral 与开放管线加持下已经把单样本配体组推到数万条量级,而细菌呈递肽的化学性质(更长的肽段、更弱的结合、更低的丰度)意味着同样的深度跃升在这里只会更难也更有价值。呈递组学在感染领域的真正瓶颈从来不是”有没有肽”,而是呈递的动态性——感染时相、组织分布与抗原提呈细胞类型都在改写呈递清单,作者也承认体外 BMDC 感染只是体内感染景观的一个近似[1];更不必说 F. tularensis 本身就会通过 MARCH1 依赖的机制下调巨噬细胞的 MHC-II 表达[16],呈递与逃逸的拉锯就发生在测量窗口之内。
把这项工作放进更大的坐标系里看,它的范式意义或许比具体结论更有分量。衣原体、结核、沙门菌、李斯特菌的免疫肽组学研究已经各自示范了”质谱直接读取 MHC 配体”对疫苗抗原发现的价值[9][10][11][12][13],土拉菌病这项工作则补上了一块重要的拼图:对一支以 CD4 保护为核心机制的疫苗,从呈递证据出发、经免疫原性分层、到功能评估的完整证据链是可以走通的,尽管最后一公里——从部分控制到完全保护——依然要靠 CD8 协同、佐剂优化与更合适的动物模型来接力。对当下的个体化新抗原疫苗产业而言,这个来自生物防御领域的样本也是一个提醒:免疫肽组学的通用性恰恰在于它不关心抗原来自突变基因还是细菌基因组,而”呈递证据先行”的设计逻辑,无论对肿瘤疫苗还是传染病疫苗,都是同一条纪律。
- Laskova P, Porkertova S, Ballek O, Balonova L, Pavloskova J, Neuwirth A, et al. Immunopeptidomics reveals conserved and abundant Francisella tularensis proteins as immunogenic CD4 T cell antigens in mice. PLoS Pathog. 2026;22(9):e1014597. doi:10.1371/journal.ppat.1014597
- Harrell JE, Roy CJ, Gunn JS, McLachlan JB. Current vaccine strategies and novel approaches to combatting Francisella infection. Vaccine. 2024;42(9):2171–80. doi:10.1016/j.vaccine.2024.02.086
- Elkins KL, Kurtz SL, De Pascalis R. Progress, challenges, and opportunities in Francisella vaccine development. Expert Rev Vaccines. 2016;15(9):1183–96. doi:10.1080/14760584.2016.1182490
- Cowley SC, Elkins KL. Immunity to Francisella. Front Microbiol. 2011;2:26. doi:10.3389/fmicb.2011.00026
- Roberts LM, Powell DA, Frelinger JA. Adaptive immunity to Francisella tularensis and considerations for vaccine development. Front Cell Infect Microbiol. 2018;8:115. doi:10.3389/fcimb.2018.00115
- Valentino MD, Hensley LL, Skrombolas D, McPherson PL, Woolard MD, Kawula TH, et al. Identification of a dominant CD4 T cell epitope in the membrane lipoprotein Tul4 from Francisella tularensis LVS. Mol Immunol. 2009;46(8–9):1830–8. doi:10.1016/j.molimm.2009.03.011
- Valentino MD, Maben ZJ, Hensley LL, Woolard MD, Kawula TH, Frelinger JA, et al. Identification of T-cell epitopes in Francisella tularensis using an ordered protein array of serological targets. Immunology. 2011;132(3):348–60. doi:10.1111/j.1365-2567.2010.03377.x
- Zvi A, Rotem S, Bar-Haim E, Cohen O, Shafferman A. Whole-genome immunoinformatic analysis of F. tularensis: predicted CTL epitopes clustered in hotspots are prone to elicit a T-cell response. PLoS One. 2011;6(5):e20050. doi:10.1371/journal.pone.0020050
- Karunakaran KP, Yu H, Jiang X, Chan Q, Goldberg MF, Jenkins MK, et al. Identification of MHC-bound peptides from dendritic cells infected with Salmonella enterica strain SL1344: Implications for a nontyphoidal Salmonella vaccine. J Proteome Res. 2017;16(1):215–24. doi:10.1021/acs.jproteome.6b00620
- Bettencourt P, Müller J, Nicastri A, Cantillon D, Madhavan M, Charles PD, et al. Identification of antigens presented by MHC for vaccines against tuberculosis. NPJ Vaccines. 2020;5:2. doi:10.1038/s41541-019-0134-5
- Mayer RL, Verbeke R, Asselman C, Aernout I, Gul A, Eggermont D, et al. Immunopeptidomics-based design of mRNA vaccine formulations against Listeria monocytogenes. Nat Commun. 2022;13(1):6075. doi:10.1038/s41467-022-33755-0
- Gul A, Pewe LL, Willems P, Mayer RL, Asselman C, Van Laere L, et al. Immunopeptidomics mapping of Listeria monocytogenes T cell epitopes in mice. Mol Cell Proteomics. 2024;23(9):100829. doi:10.1016/j.mcpro.2024.100829
- Leddy O, Ogongo P, Huffaker J, Gan M, Milligan R, Mahmud S, et al. Immunopeptidomics can inform the design of mRNA vaccines for the delivery of Mycobacterium tuberculosis MHC class II antigens. Sci Transl Med. 2025;17(823):eadw9184. doi:10.1126/scitranslmed.adw9184
- Croft NP, Smith SA, Pickering J, Sidney J, Peters B, Faridi P, et al. Most viral peptides displayed by class I MHC on infected cells are immunogenic. Proc Natl Acad Sci USA. 2019;116(8):3112–7. doi:10.1073/pnas.1819738116
- Graham DB, Luo C, O’Connell DJ, Lefkovith A, Brown EM, Yassour M, et al. Antigen discovery and specification of immunodominance hierarchies for MHCII-restricted epitopes. Nat Med. 2018;24(11):1762–72. doi:10.1038/s41591-018-0203-2
- Hunt D, Wilson JE, Weih KA, Ishido S, Harton JA, Roche PA, et al. Francisella tularensis elicits IL-10 via a PGE2-inducible factor, to drive macrophage MARCH1 expression and class II down-regulation. PLoS One. 2012;7(5):e37330. doi:10.1371/journal.pone.0037330
- da Silva Antunes R, Garrigan E, Quiambao LG, Dhanda SK, Marrama D, Westernberg L, et al. T cell reactivity to Bordetella pertussis is highly diverse regardless of childhood vaccination. Cell Host Microbe. 2023;31(8):1404–16.e4. doi:10.1016/j.chom.2023.06.012
内容经AI校正和润色,审慎阅读