本文由WorkBuddy Agent撰写并直接通过WordPress API发布于笔者个人网站www.liangxiao.pro。内容可能存在不准确之处,仅供研究参考。
单细胞测序把肿瘤浸润T细胞的克隆地图画到了前所未有的分辨率:哪些克隆在扩增、哪些带着耗竭标记、哪些在治疗中翻倍,都看得清清楚楚。地图上缺的是地名——绝大多数TCR不知道自己在认什么。KU Leuven的Lambrechts团队把补齐这件事做成了一道可复用的工序:TWISTAR[1],用患者肿瘤自己的转录本当作抗原候选池,给来自黑色素瘤、乳腺癌与肝细胞癌三种临床情境的61个TCR做去孤儿化,40个拿到了答案,31个表位被合成肽逐一确认。这份清单最值得注意的是构成而非通量:突变新抗原只占很小一角,撑起治疗中免疫应答的是一批来自非经典翻译事件的共享抗原,而同一个表位常常被多个序列无关的克隆同时识别。
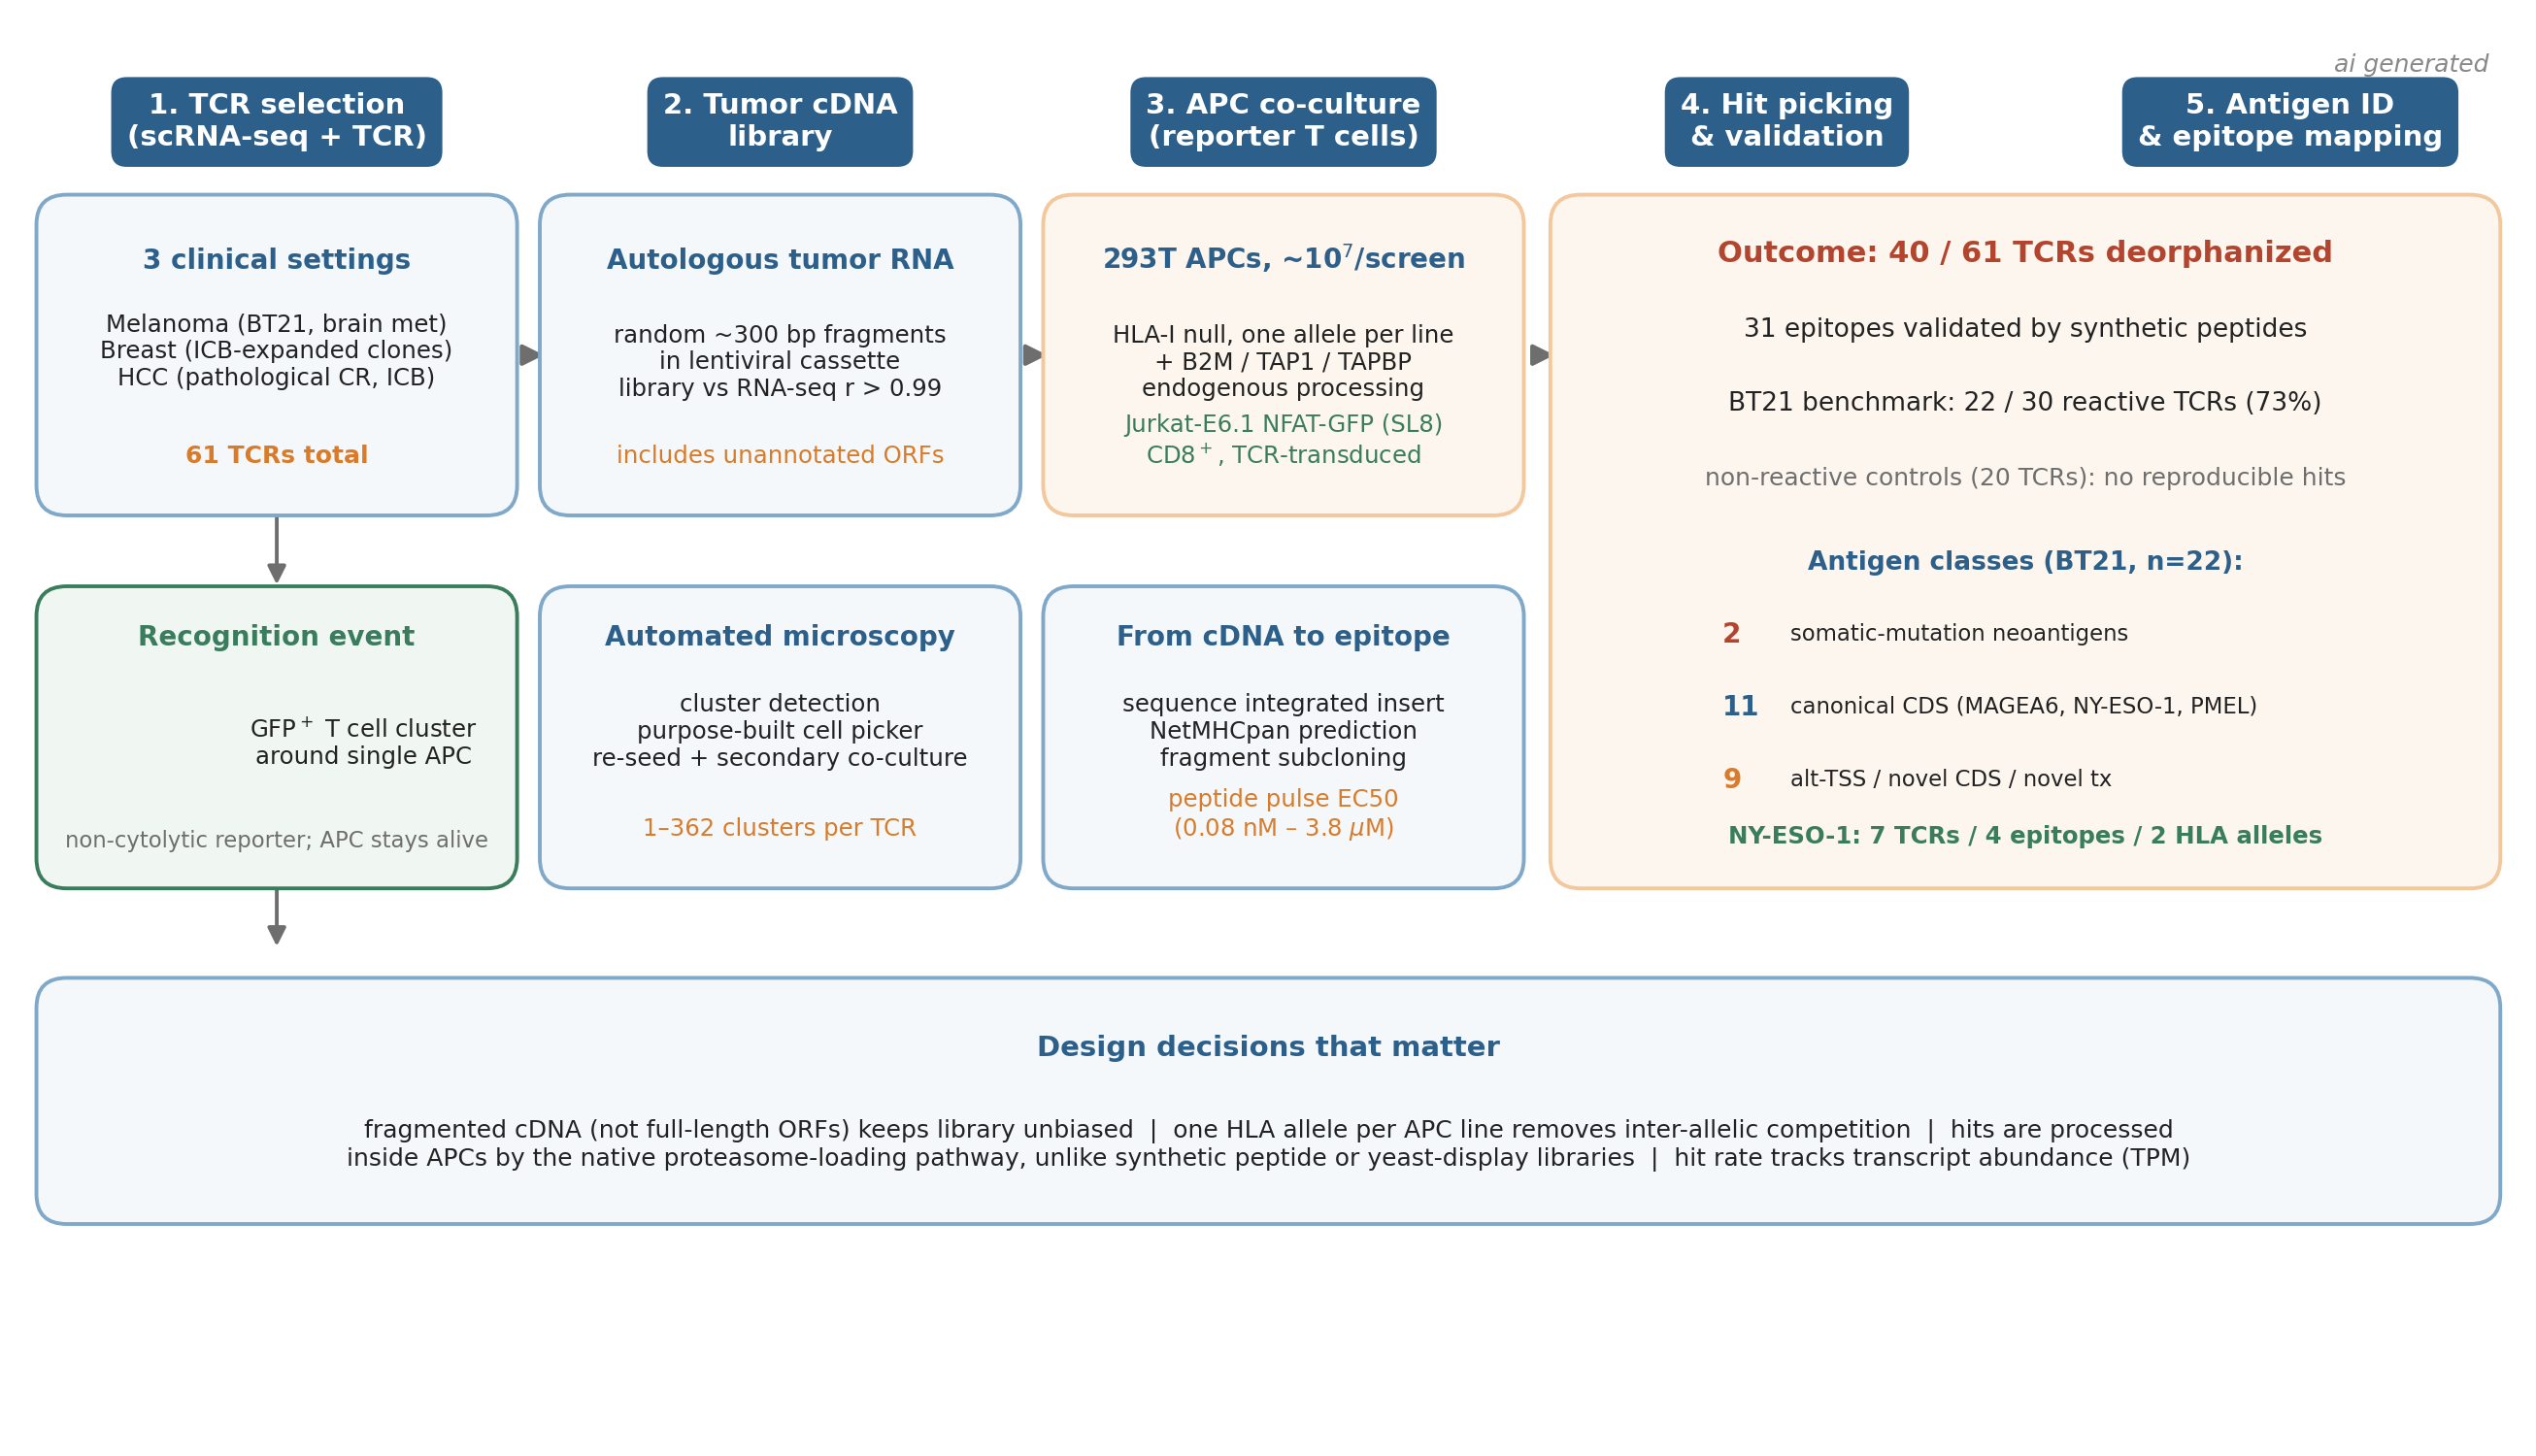
TWISTAR的搜索空间既不是注释基因组,也不是从头预测的蛋白质组,而是肿瘤RNA本身。把肿瘤转录组随机打断成约三百碱基的片段装进慢病毒,转导百万级293T呈递细胞——这些细胞先被敲空内源HLA,再按等位基因逐个重表达,并过表达B2M、TAP1与TAPBP提高装载效率。报告T细胞是从Jurkat-E6.1重建的NFAT-GFP系:CRISPR敲掉内源TCR,装入多拷贝报告盒与CD8,再转导目标TCR。识别发生时,GFP阳性的T细胞会围着单个APC聚簇,显微镜自动检出,拾取器把对应APC捞出扩增复测,然后测序整合的cDNA片段,用NetMHCpan预测候选表位,最后以合成肽脉冲定出EC50。三个设计决定值得单独记下:cDNA随机片段化而非全长克隆,使文库覆盖与RNA-seq的相关性保持在0.99以上;每个HLA等位基因独占一套APC,避免等位基因间竞争;候选片段在293T内走完蛋白酶体切割与装载的全流程。最后这点是它区别于合成肽库与酵母展示的根本之处——命中的序列天然经过加工,尽管是在293T而非患者肿瘤里,这个差别下文还要回来。
基准测试用的是BT21,一株来自黑色素瘤脑转移的细胞系,其肿瘤反应性TCR早前已由同一团队的单细胞数据描述过[2]。30个对BT21有溶细胞活性的TIL TCR里,22个(73%)拿到了抗原,作者称之为此前未见报道的去孤儿化率;20个无肿瘤反应性的同源TCR作对照,只留下不能复传的弱簇。抗原分布在15个基因上,表达量从10到964 TPM不等,簇数与转录本丰度正相关——筛查灵敏度被文库覆盖度约束。真正意外的是构成:22个抗原只有2个是体细胞突变新抗原;11个来自经典编码序列,其中NY-ESO-1一个抗原被7个TCR识别、对应4条不同表位与2种HLA;其余9个来自替代转录起始、lncRNA内部的新编码框与全新转录本——ALKBH7-202丢了线粒体定位信号反而呈递更强,LINC00221与TBC1D16-202在注释为非编码的转录本里藏有可翻译的新框,TWR-NT1则是FOXR2上游外显子拼出的132碱基开放阅读框,只有当它不以完整FOXR2编码框竞争翻译时才被翻译出来[1]。
| 病例情境 | 输入TCR | 去孤儿化 | 突变新抗原 | 代表性非突变抗原 |
|---|---|---|---|---|
| 黑色素瘤脑转移(BT21) | 30个反应性 + 20个对照 | 22 / 30(73%) | 2(SMARCB1错义;CDKN2A提前终止改变加工) | NY-ESO-1(7个TCR)、MAGEA6(疑似剪接肽)、PMEL、SETDB1、LINC00221、TBC1D16-202、TWR-NT1 |
| 乳腺癌(ICB扩增克隆) | 10个扩增 + 2个未扩增 | 7 / 10(未扩增者0) | 0 | FTHL17(首个T细胞识别证据)、RAB11B uORF、EXOSC3 uORF、PRPF6、HELZ内含子 |
| 肝细胞癌(病理完全缓解) | 19个优势克隆型 | 10个TCR / 6个抗原 | 1(MYO18A,野生型肽亦可识别) | DCAF4L2(8个TCR、3条肽、2种HLA)、SOAT2、MTSS1 altORF、lncRNA ENSG00000297530 |
两个突变案例各有教益。SMARCB1突变落在表位中央,是教科书式的新抗原;CDKN2A的突变只引入一个下游提前终止密码子,表位序列本身是野生型——截短蛋白被不同方式加工,这条肽才得以出现在HLA上,任何以”突变残基必须在表位内”为前提的预测管线都找不到它。MAGEA6则更怪:最小识别片段207碱基、编码69肽,两端都带A*24:02锚定基序,作者怀疑是肽剪接,与蛋白酶体剪接肽的旧争议遥相呼应;顺带一提,这条TCR交叉识别MAGEA3但不识别MAGEA12,恰好与当年MAGEA3 TCR临床试验的脑毒性教训(MAGEA12交叉反应)互为镜像[3]——交叉反应的方向从来不按预期排队。
更值得注意的是这些抗原的表达分布。LINC02946-210在超过60%的皮肤与葡萄膜黑色素瘤中表达;LINC00221在35%的黑色素瘤、25%的肝细胞癌、13%的肺癌与10%的膀胱癌中上调,而正常组织除睾丸外几乎沉默——LINC00221在HCC中本就被报道是促癌因子[4],TBC1D16-202也是被去甲基化激活、驱动黑色素瘤进展的隐秘转录本[5]。这类lncRNA来源表位的EC50低至0.08与3 nM,”肿瘤相关抗原只有低亲和力TCR”的教条在这里被打穿,作者的解释是中枢耐受对这些转录本过于宽容。肿瘤免疫的靶标池不是由突变编写的,而是被表观遗传失调重新打开的,并且跨癌种共享。
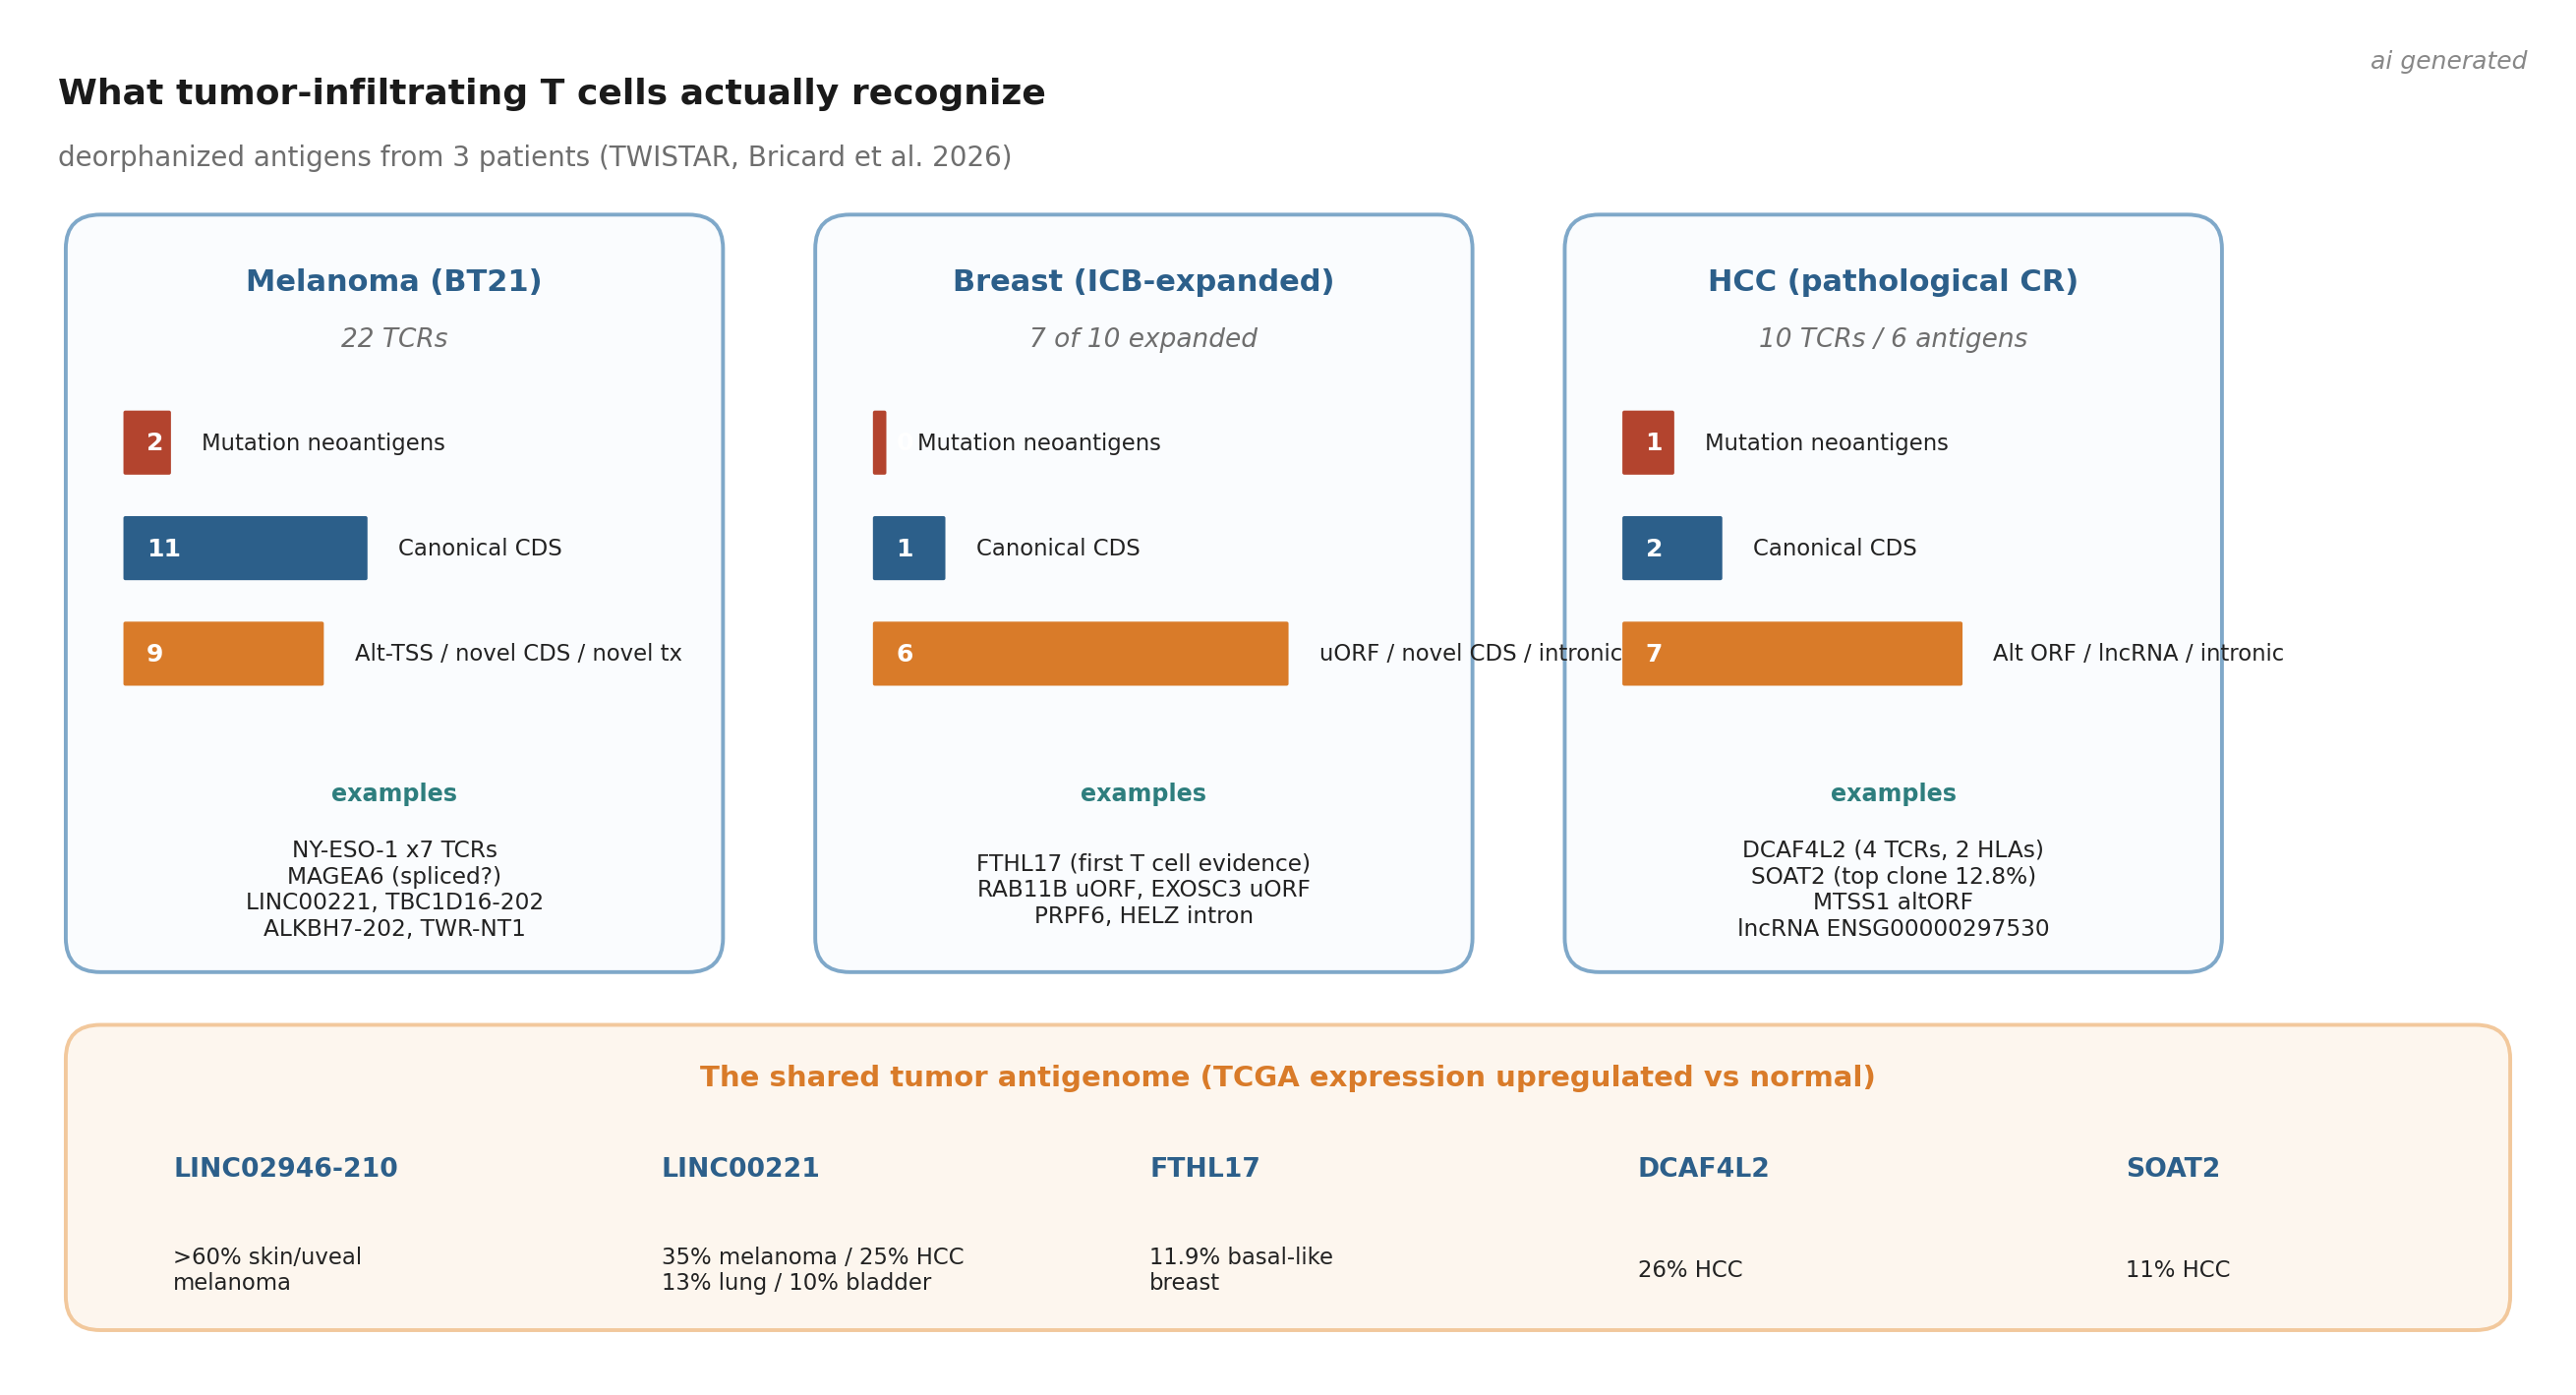
乳腺癌例来自Bassez队列——单剂量抗PD-1后切除、配对活检做过单细胞测序的那组患者[6]。治疗中扩增的10个优势克隆型里7个拿到了抗原,5个抗原没有一个来自体细胞突变:FTHL17这个二十多年前就被描述的癌睾基因第一次有了T细胞识别的证据;RAB11B与EXOSC3的表位来自上游ORF,PRPF6来自已知转录本内的新编码框,HELZ的表位则来自内含子里一段新发现的转录区。两个TCR的β链完全不同、α链高度相似,认同一个A*01:01限制的FTHL17表位,从治疗前的不可检出(0/291个CD8细胞)扩到治疗中的6/310与7/310。作者用公开免疫肽组数据回查,RAB11B与EXOSC3同一阅读框来源的肽曾在质谱数据中被观察到(急性髓系白血病与黑色素瘤样本)——质谱”看到过”与T细胞”认得出”,在这几条肽上第一次接上了头。没拿到肿瘤抗原的5个TCR在十万八千条病毒组序列里筛出1个EBV特异;而IEDB曾把同一TCR标注为CMV特异,作者用肽脉冲直接证伪。数据库驱动的TCR-抗原注释需要原始证据复核,这与同期Immunity那篇T-RAP报告的结论——约半数已发表的TCR反应性在标准化条件下不能复现——指向同一件事[7]。
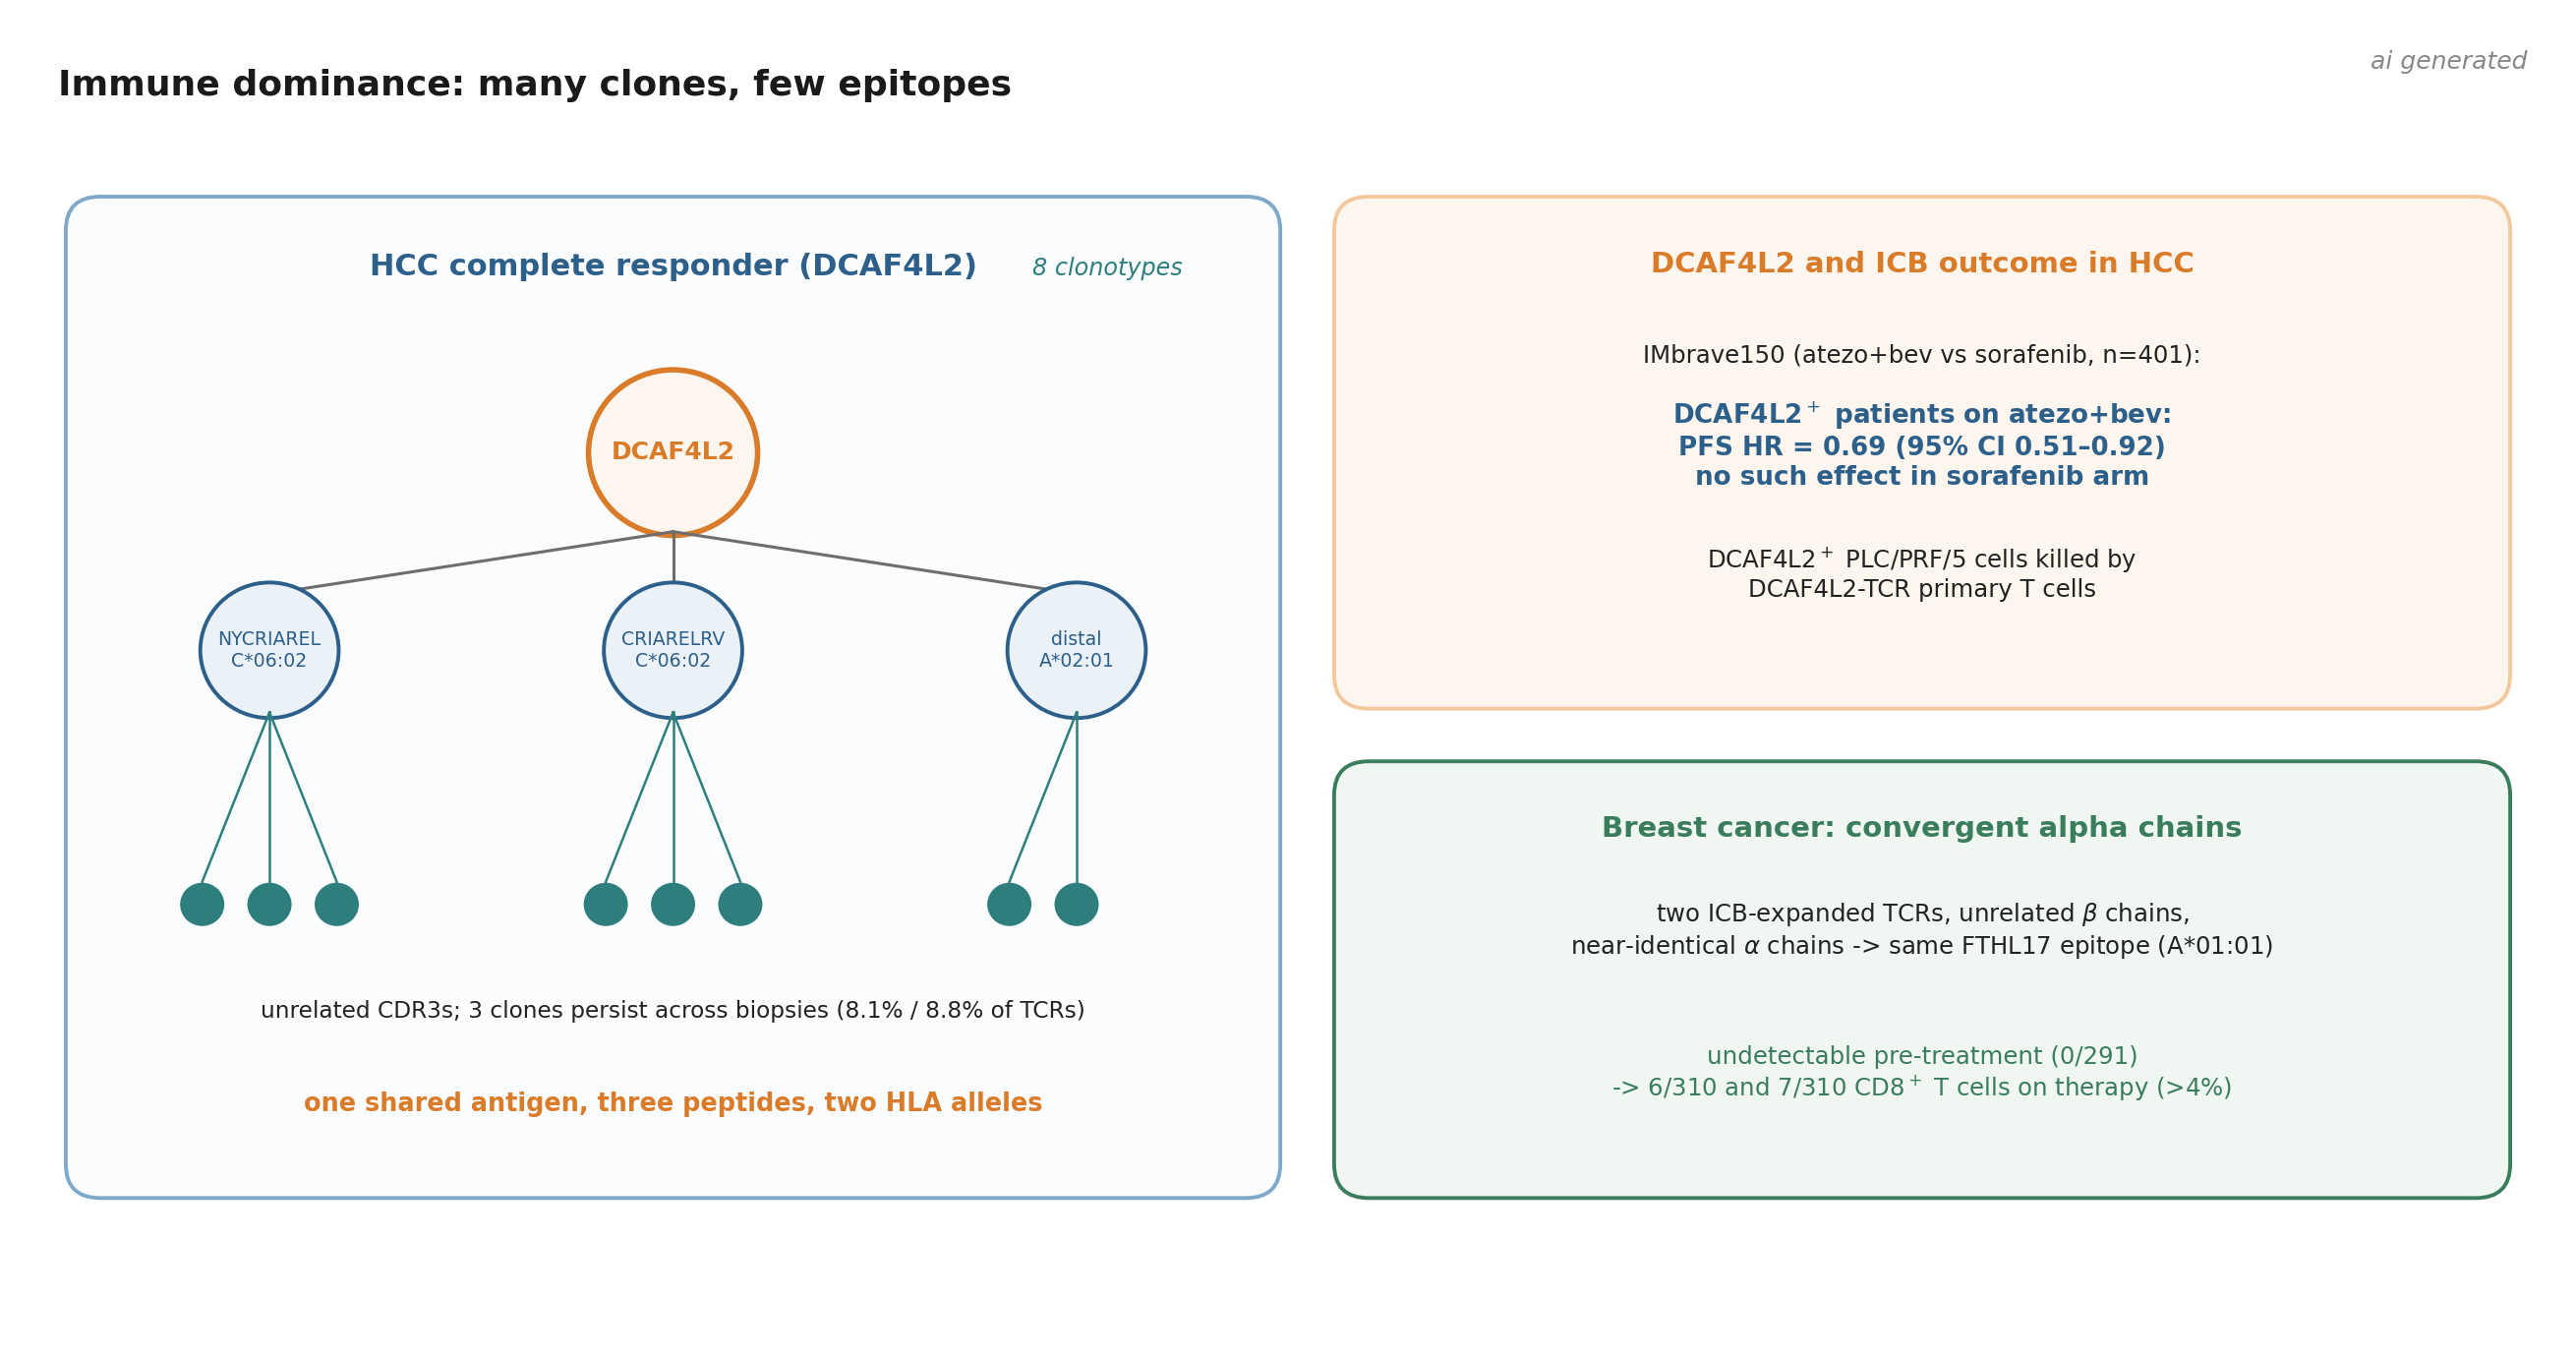
肝细胞癌例最完整:一例12厘米病灶,两个月ICB后影像学显著退缩,切除标本病理完全缓解。两次活检共19个优势克隆型,10个去孤儿化对应6个抗原,仅1个来自突变。占比最高的克隆型(12.8%的CD8)认的是SOAT2表位;4个TCR认DCAF4L2上C*06:02限制的两条重叠肽NYCRIAREL与CRIARELRV,3个克隆型在两次活检中合计占8.1%与8.8%,CDR3彼此几乎无同源性。把两次活检的全部TCR序列建成库去筛DCAF4L2阳性的293T:C*06:02上又多出2个TCR,A*02:01上另有2个TCR识别远端第三条肽。单一共享抗原在两种HLA、三条肽、八种TCR上的这种多车道结构,是”一突变一肽一HLA”的私有新抗原给不了的带宽。IMbrave150的回顾性分层把故事推进一步:DCAF4L2阳性的患者在atezo+bev组无进展生存更好(HR 0.69,95% CI 0.51–0.92),索拉非尼组无此效应[8];PLC/PRF/5被DCAF4L2 TCR有效杀伤。关联不是因果,但链条已闭合到值得前瞻验证的程度。
作为读者,有几条边界需要划清。其一,”天然加工”发生在293T而非患者肿瘤:TWISTAR证明的是这段转录本具备产生可识别肽的潜力,多数表位在患者肿瘤细胞上的直接呈递证据仍靠肿瘤细胞系杀伤、TCGA表达与公开免疫肽组数据间接拼合;对一篇批评预测管线不建模加工的文章,这条边界值得同等严格地对待。其二,选择偏差是结构性的:输入TCR都按肿瘤反应性或ICB扩增预选,73%的去孤儿化率是这个条件下的数字,免疫优势的观察部分也是只看最高频克隆的自然结果,平台回答不了整个repertoire如何分配的问题。其三,簇数与转录本丰度正相关意味着低丰度转录本被系统性漏检,暗转录组最深处恰好是文库够不着的地方,肿瘤纯度还会进一步稀释信号。其四,293T过表达B2M/TAP1/TAPBP后的呈递效率高于多数实体瘤,肽脉冲EC50测的是外源肽滴度而非天然展示密度。三种癌型各一例患者,DCAF4L2与ICB应答的关联也需要独立队列。
尽管如此,这篇预印本把免疫肽组学过去几年反复”看到”的非经典呈递推进到了功能层面。质谱清单上那些来源可疑的配体,如今在一例接一例的患者里被证明不但在肿瘤中产生,还被治疗中扩增的T细胞认出,并在某些患者身上构成主导应答[9];Ely等人在胰腺癌里用免疫肽组学与条码TCR映射的组合走过同一段路[10]。TWISTAR的不同在于用cDNA文库把搜索空间从注释基因组扩到了肿瘤的全部转录产物。对免疫肽组学同行,含义相当具体:暗抗原缺的可能从来不是免疫原性,而是恰好没有人带着对应的TCR去问;反过来,功能平台给出的候选,也需要质谱回到患者肿瘤上确认天然呈递。两条路线互为质控——这个判断笔者此前写功能筛选与免疫肽组学之争时用过,TWISTAR算是把抽象的互补性落到了具体的抗原名字上。若共享非经典抗原的图景在更多患者中成立,现货型疫苗与共享TCR管线的候选池会大一圈,而个体化疫苗”有效应答常只落在编码表位的一小部分、相当比例患者毫无应答”的老问题[11][12]也有了一个新的补位方向。ICB并没有唤醒散布在整个抗原组上的弥散应答,它把少数共享表位上的既有克隆推成了主力——抗原发现要跟上的,是这个清单的形状。
参考文献
- Bricard O, Seyed Rahmani R, Peeters F, et al. Functional deorphanization of tumor-reactive TCRs uncovers a landscape of shared, immune dominant antigens across cancers. bioRxiv 2026. DOI: 10.64898/2026.09.28.755065.
- Tan CL, et al. Prediction of tumor-reactive T cell receptors from scRNA-seq data for personalized T cell therapy. Nature Biotechnology 2025;43(1):134-142. DOI: 10.1038/s41587-024-02161-y.
- Morgan RA, Chinnasamy N, Abate-Daga D, et al. Cancer regression and neurological toxicity following anti-MAGE-A3 TCR gene therapy. Journal of Immunotherapy 2013;36(2):133-151. DOI: 10.1097/CJI.0b013e3182829903.
- Yang L, et al. LINC00221 silencing prevents the progression of hepatocellular carcinoma through let-7a-5p-targeted inhibition of MMP11. Cancer Cell International 2021;21(1):202. DOI: 10.1186/s12935-021-01819-w.
- Vizoso M, et al. Epigenetic activation of a cryptic TBC1D16 transcript enhances melanoma progression by targeting EGFR. Nature Medicine 2015;21(7):741-750. DOI: 10.1038/nm.3863.
- Bassez A, Vos H, Van Dyck L, et al. A single-cell map of intratumoral changes during anti-PD1 treatment of patients with breast cancer. Nature Medicine 2021;27(5):820-832. DOI: 10.1038/s41591-021-01323-8.
- Messemaker M, Kwee BPY, Moravec Ž, et al. Functional evaluation of TCR-pMHC pairs at scale allows in silico TCR reactivity prediction. Immunity 2026. DOI: 10.1016/j.immuni.2026.09.007.
- Finn RS, Qin S, Ikeda M, et al. Atezolizumab plus bevacizumab in unresectable hepatocellular carcinoma. New England Journal of Medicine 2020;382(20):1894-1905. DOI: 10.1056/NEJMoa1915745.
- Laumont CM, Vincent K, Hesnard L, et al. Noncoding regions are the main source of targetable tumor-specific antigens. Science Translational Medicine 2018;10(423):eaau5516. DOI: 10.1126/scitranslmed.aau5516.
- Ely ZA, Kulstad ZJ, Gunaydin G, et al. Pancreatic cancer-restricted cryptic antigens are targets for T cell recognition. Science 2025;388(6747):eadk3487. DOI: 10.1126/science.adk3487.
- Ottensmeier CH, Delord JP, Lalanne A, et al. A viral-based individualized neoantigen vaccine (TG4050, MVA vector) as adjuvant treatment in resected head and neck squamous cell carcinoma: a randomized Phase I trial. Nature Communications 2026. DOI: 10.1038/s41467-026-76667-1.
- Weber JS, Carlino MS, Khattak A, et al. Individualised neoantigen therapy mRNA-4157 (V940) plus pembrolizumab versus pembrolizumab monotherapy in resected melanoma (KEYNOTE-942): a randomised, phase 2b study. The Lancet 2024;403(10427):632-644. DOI: 10.1016/S0140-6736(23)02268-7.
内容经AI校正和润色,审慎阅读